起点:一个作用对象未知的活性小分子
在表型驱动的筛药项目中,常见的情形是这样的:某个分子在细胞层面表现出稳定的效应,但它的结合对象是谁,没有任何线索。下面依据一项关于内质网相关降解(ERAD)的研究,拆解这条证据链是怎样一环一环补齐的。
ERAD 是内质网蛋白质质量控制的核心环节,负责把折叠不合格的蛋白从内质网腔或膜上转出,并交由泛素化途径处理。选择它作为切入点,是因为它对应的过程可以被荧光信号实时跟踪,天然适合做成可量化的筛药读数。
表型端:两条荧光信号构成一个读数
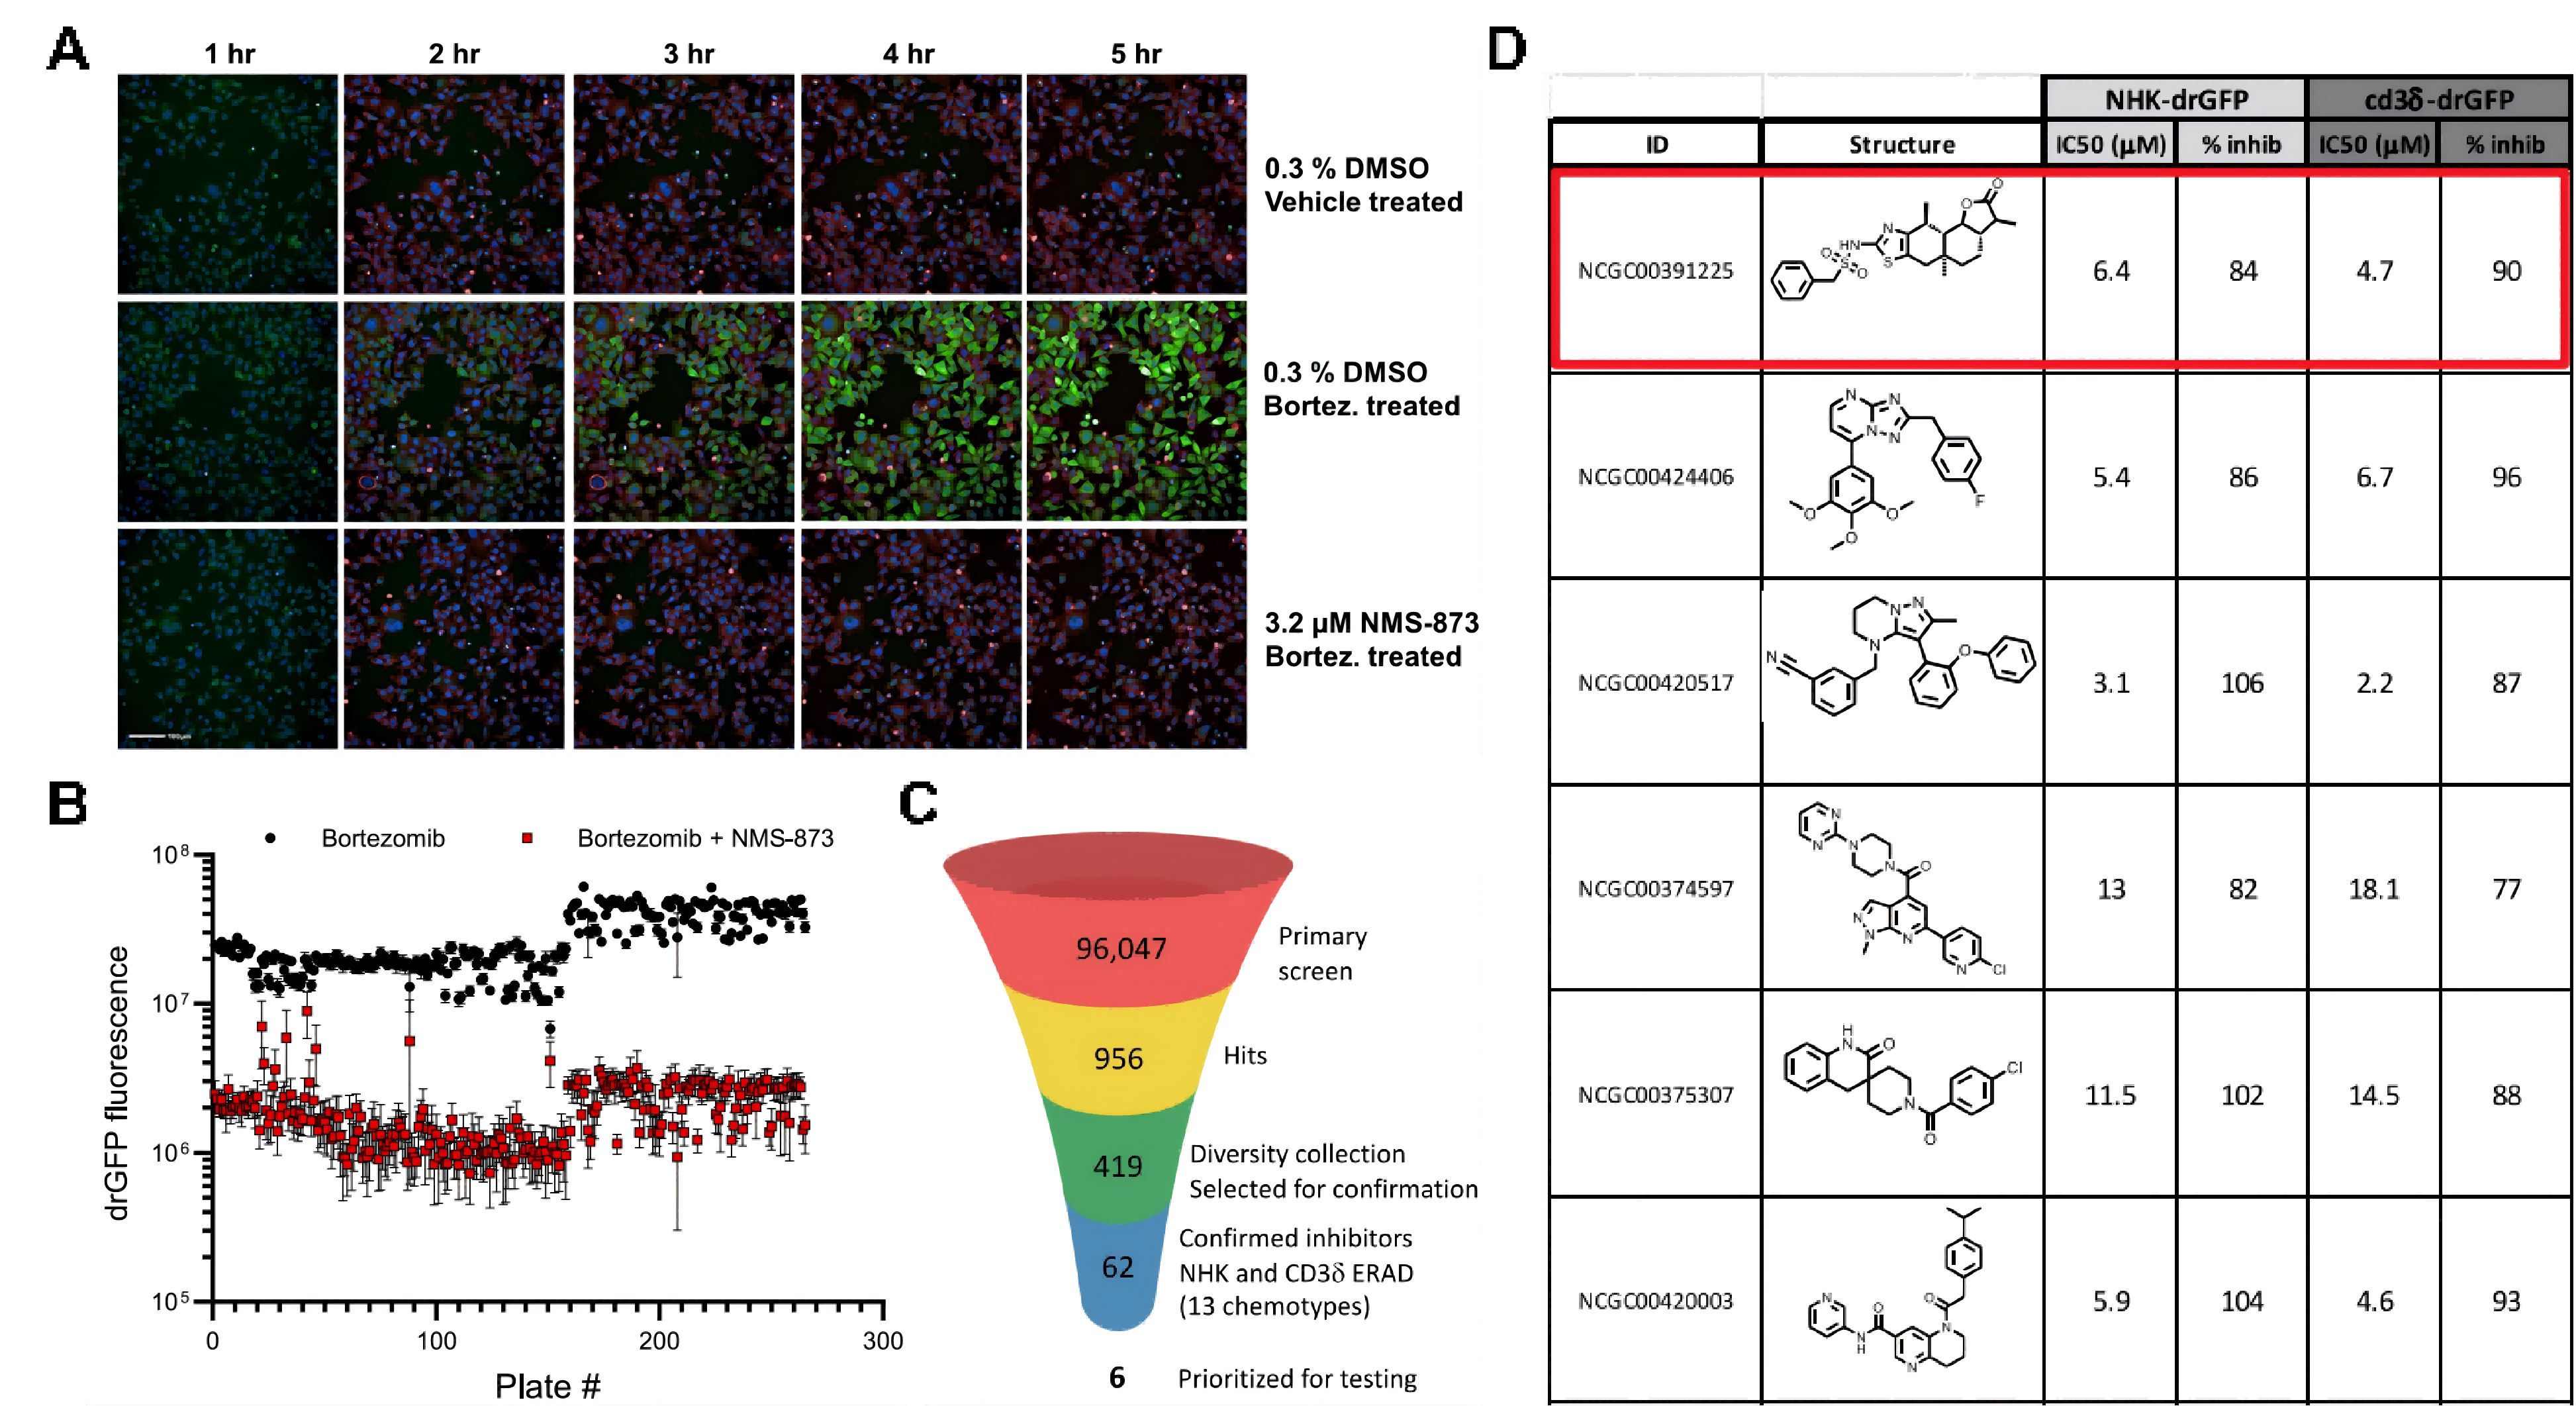
研究者搭建了一套 1536 孔板的高内涵筛选系统,在同一个孔里同时观察两件事:荧光标记的 NHK(内质网腔内的误折叠蛋白)由内质网向胞质转出的过程,以及荧光标记的 CD36(内质网膜蛋白)被清除的过程。前者提示底物转出是否被阻断,后者提示膜蛋白的清除是否受抑,两个通道合起来给出该过程的活性评分。
这套读出体系的特点是单孔信息密度高、可自动判读,因此能够支撑上万级别的化合物遍历,而不必依赖人工逐孔观察形态。
初筛与逐轮收窄
第一轮遍历覆盖了 96,047 个化合物。得到初筛命中后,研究并未直接宣布结论,而是按顺序做了三轮收窄:先在梯度浓度下确认效应是否随浓度变化,再在同一批化合物中做二次确认,最后以细胞活力为指标剔除因整体状态变差而造成的假阳性。
经过这一串步骤,候选收敛到一个小分子------NCATS-SM0225(以下简称小分子225)。高内涵读数显示,它阻断错误折叠蛋白转出与泛素化清除的方式随浓度改变,同时伴随 PERK 应激信号的激活。
靶点端:把分子做成探针
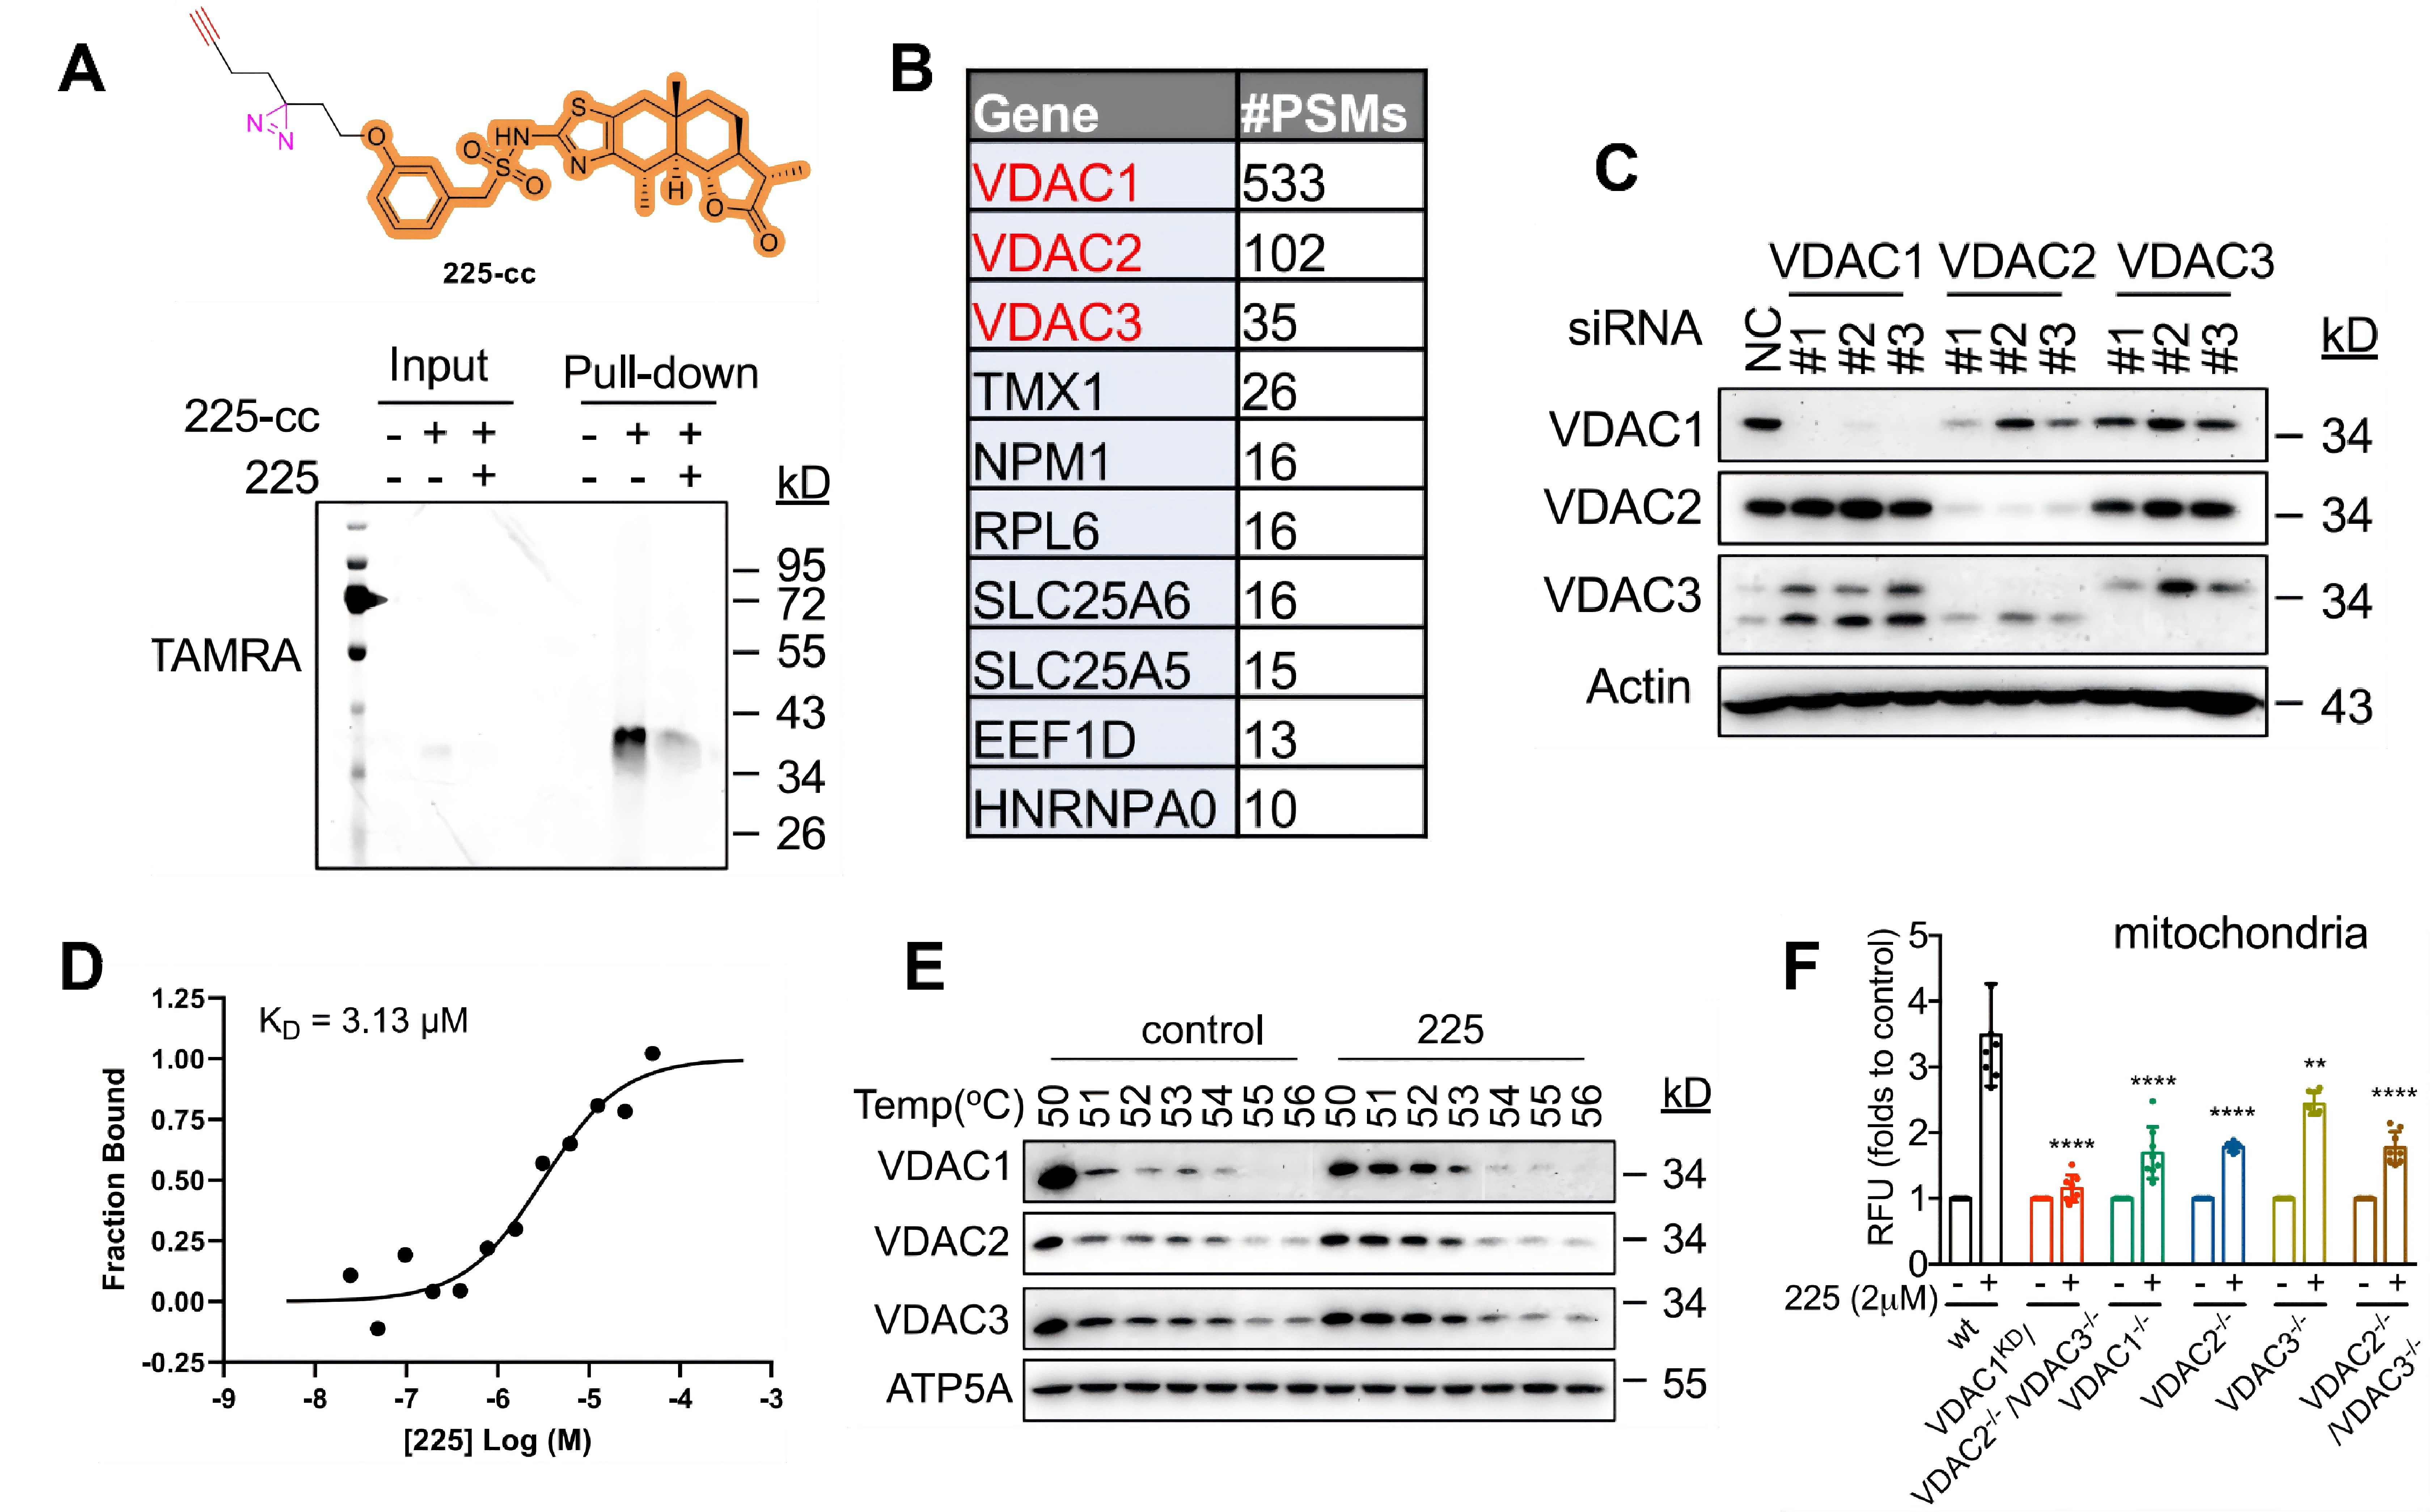
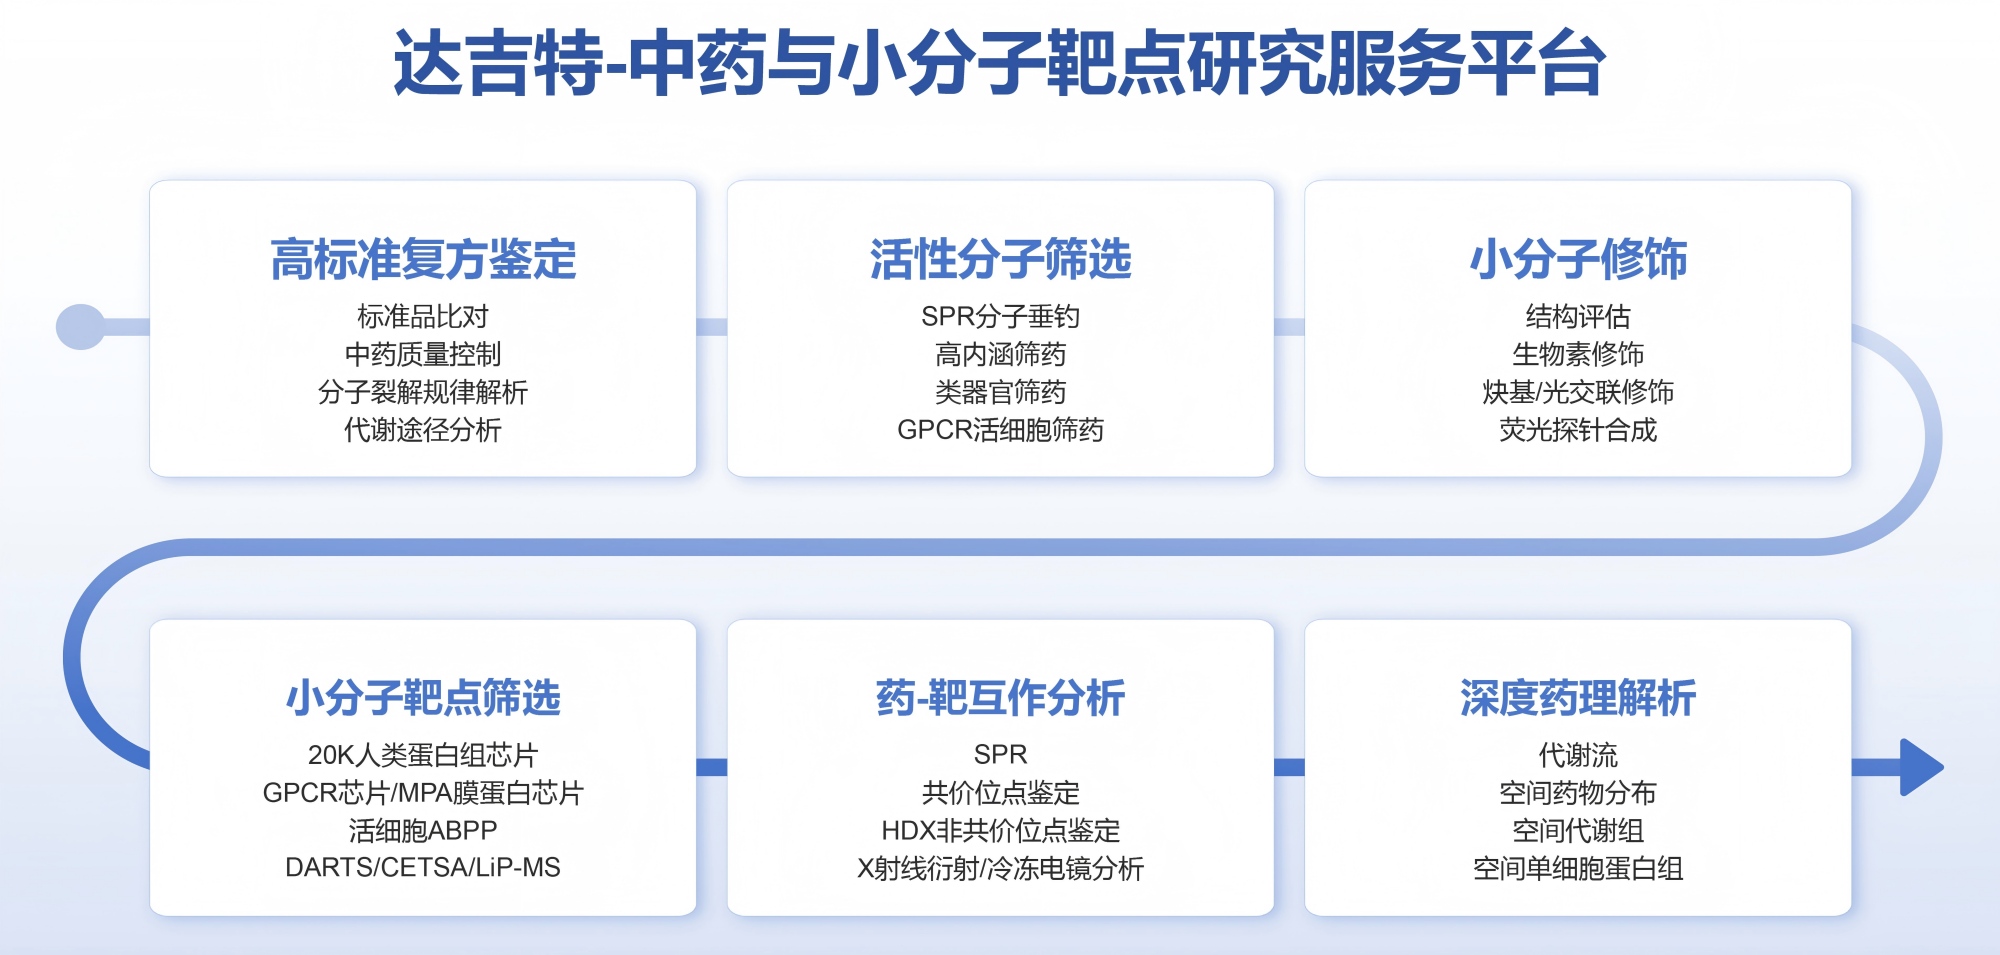
下一步要回答"结合在谁身上"。团队在小分子225 的结构上引入光交联基团与连接基团,合成了光亲和探针 225-cc,并先比对确认探针仍保留母体分子的表型效应。随后在活细胞中加入探针孵育,紫外光照引发共价交联,细胞裂解后经点击化学富集,最后送高分辨质谱鉴定。
这一设计的要点在于原位:结合发生在细胞内,靶蛋白保持天然构象与修饰状态,得到的候选蛋白更接近真实情境。
一份偏离预期的名单
质谱结果并未落在传统的 ERAD 机器组件上,而是指向线粒体外膜的电压依赖性阴离子通道蛋白家族,包括 VDAC1、VDAC2 与 VDAC3。这类结果容易被质疑为富集背景,团队因此又用微量热泳动(MST)、细胞热位移分析(CETSA)以及基因敲除细胞模型三条独立线索复核,才确立直接结合的判断。
证据链如何收口
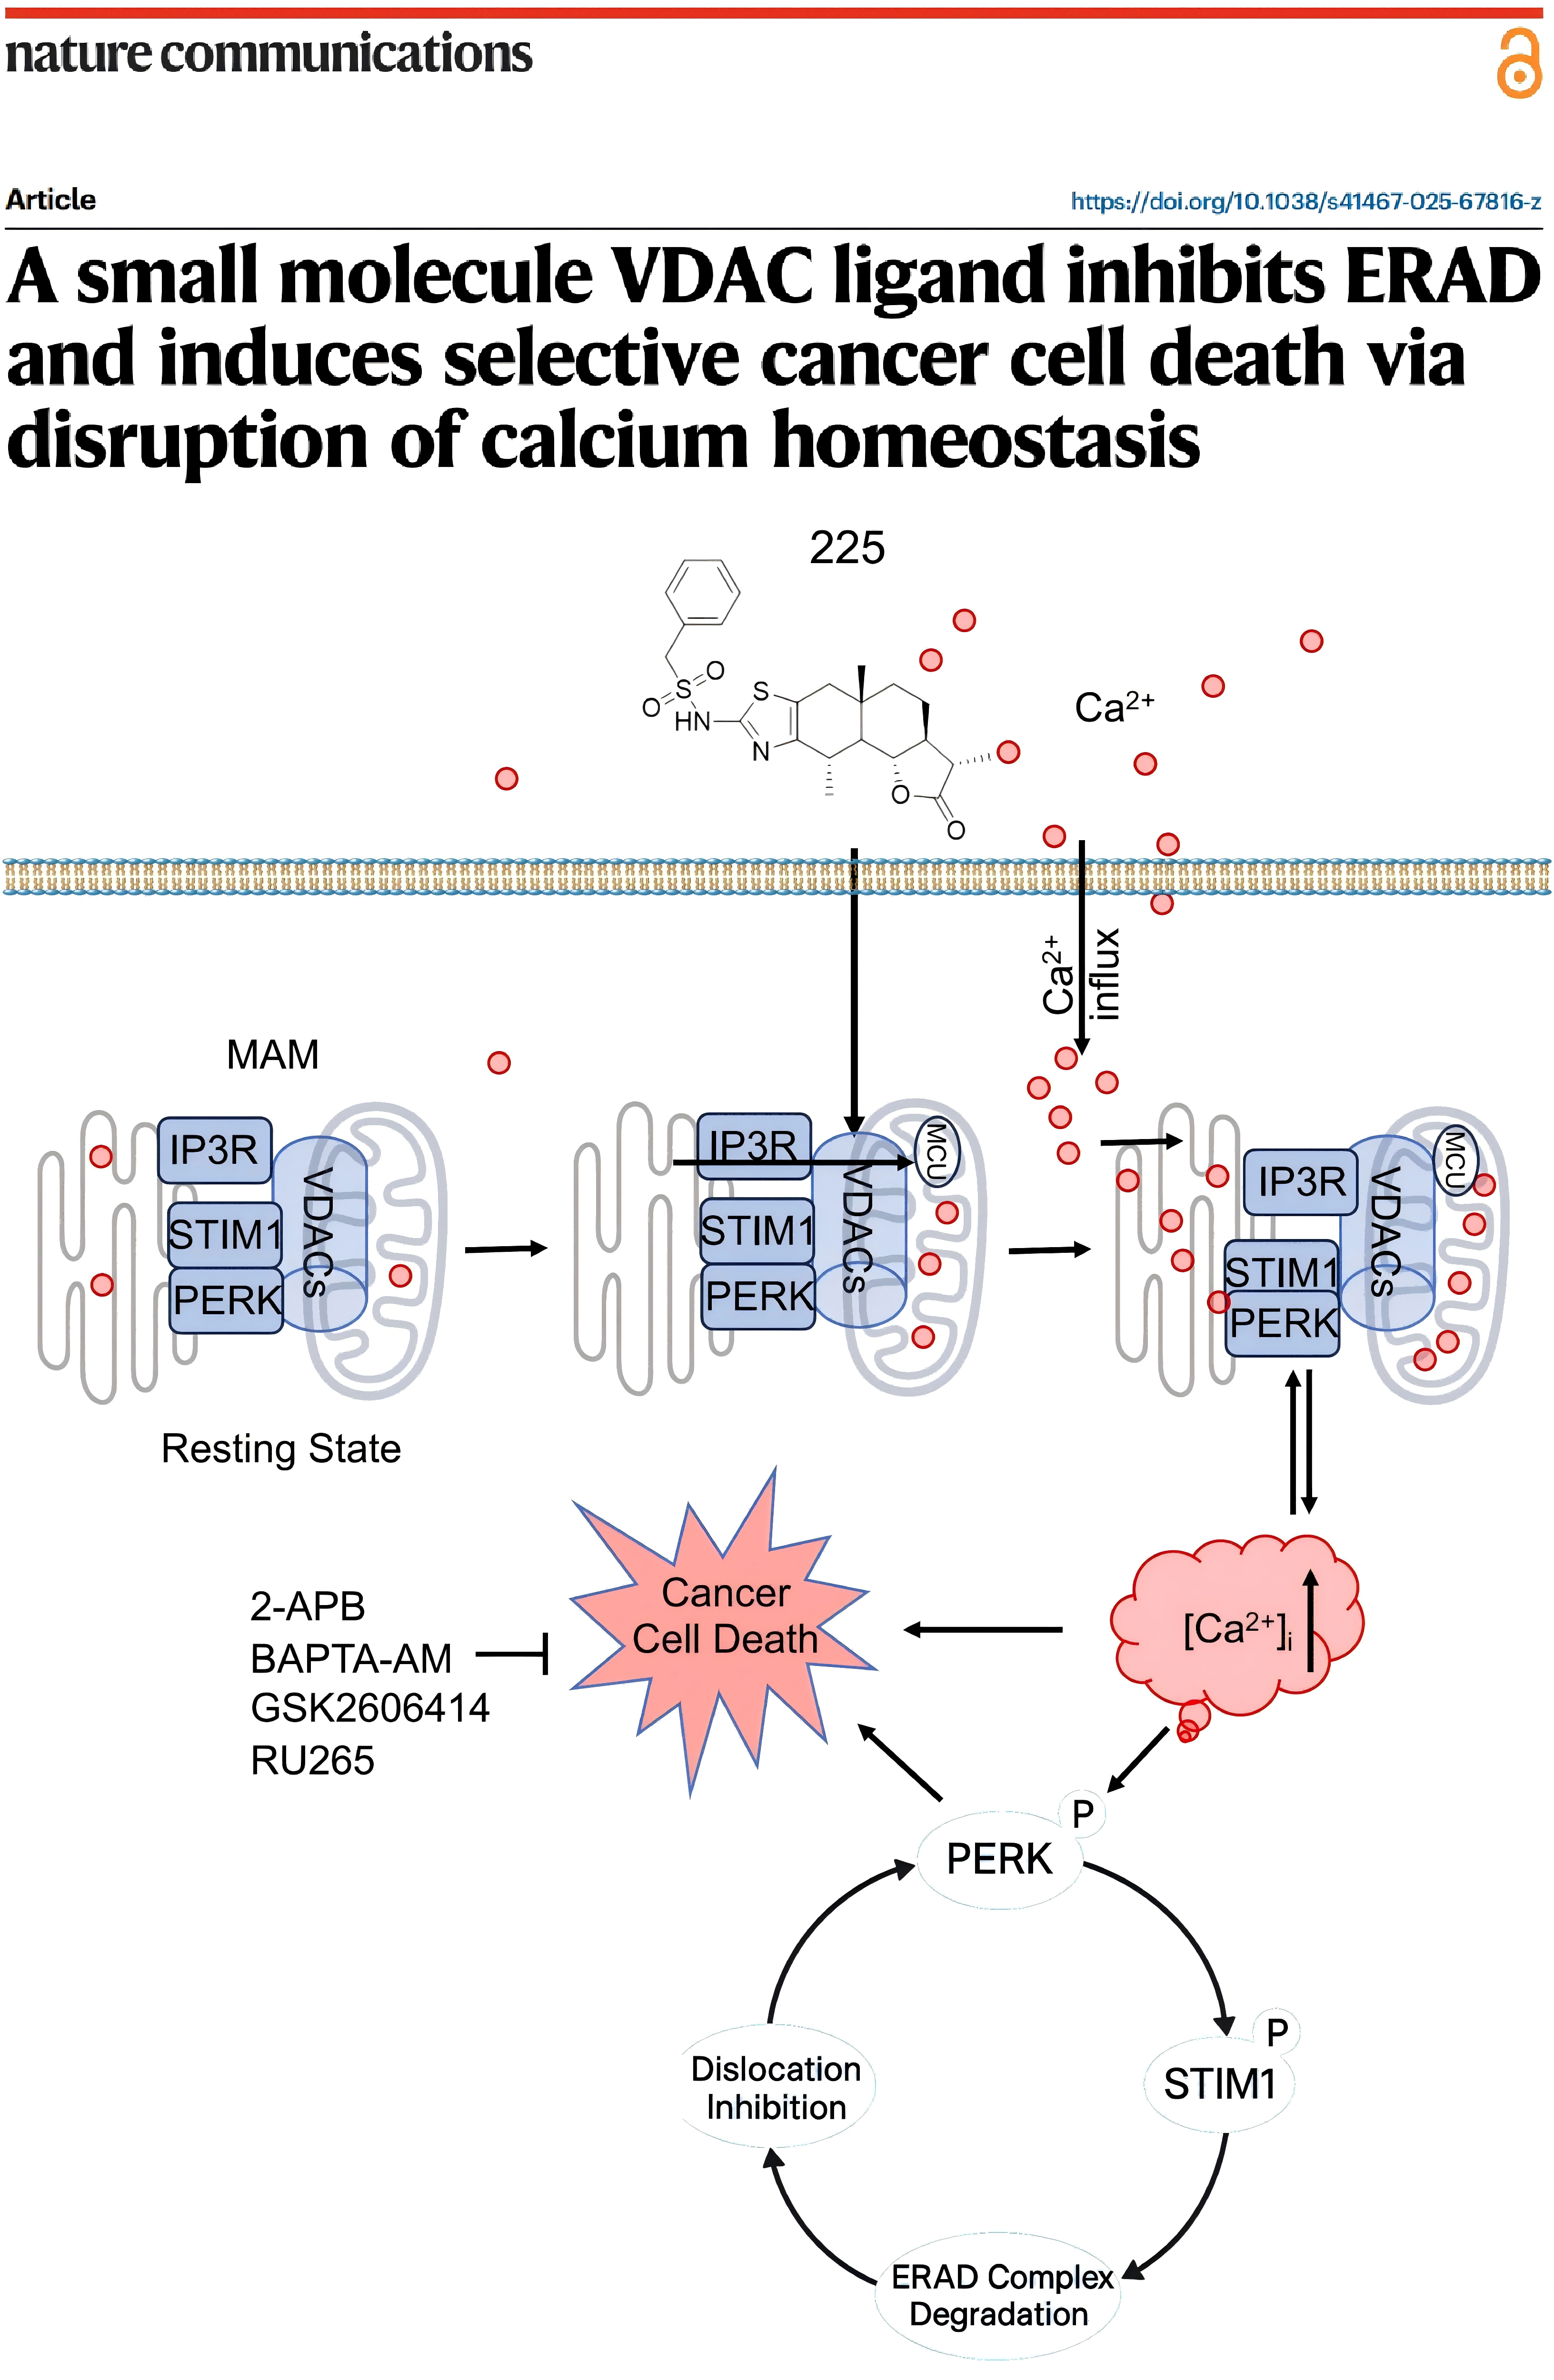
靶点确立后,机制层面的连接随之清楚:分子结合 VDAC 之后,胞质、线粒体与内质网区室的钙离子水平先后升高,原有的钙稳态被打破;随后 IP3R-PERK-STIM1 轴被激活,HERP1、OS9、FAM8A1 等核心组分发生选择性降解,该过程的功能因此持续受抑。
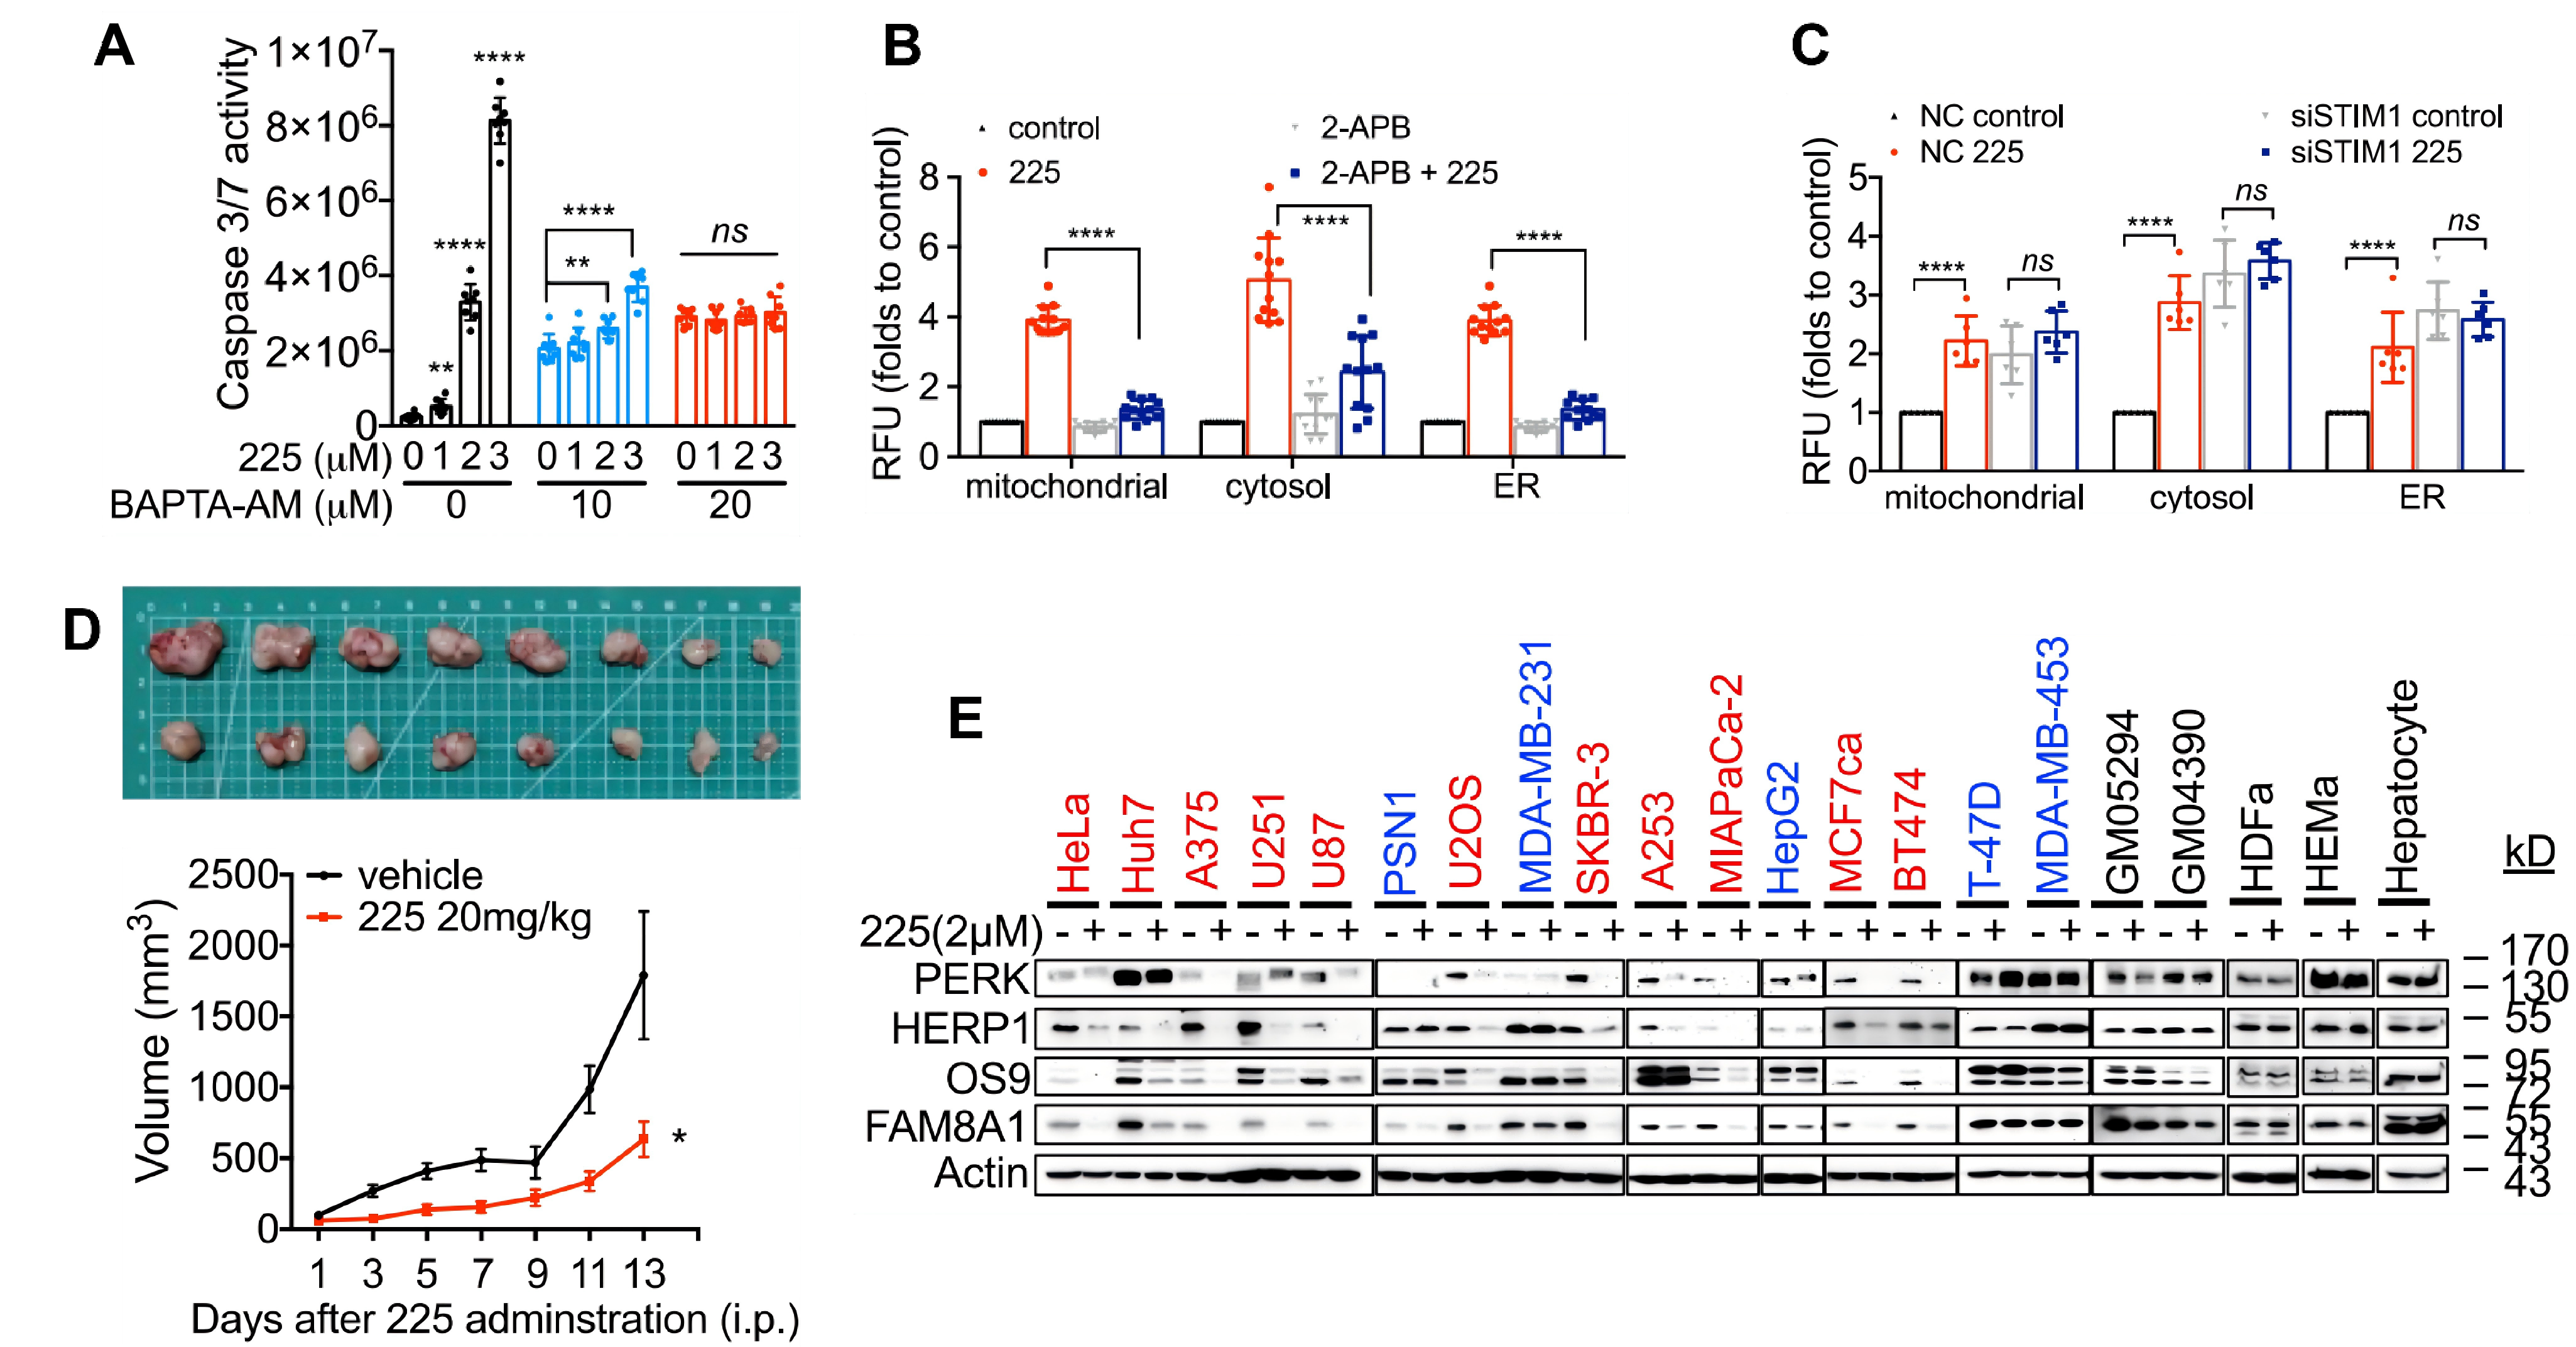
值得注意的是效应的差别:在敏感细胞模型中功能抑制明显、状态变化显著,而对照细胞受影响有限。这种差别正是选择性的来源,也提示靶点结合与细胞层面的后果之间还隔着信号网络这一步。这条路径可复用的部分不是某个具体分子,而是它的次序安排------先解决有没有可量化的表型,再解决能不能做成探针,最后解决结合证据够不够扎实。
(本文由达吉特整理相关文献资料。)
说明:本文为技术方法学分享,内容依据公开文献整理,所述化合物与试剂均限于实验室科研用途。