highlight
• 使用DenseNet通过T1加权MRI估算准确脑年龄,MAE为2.49年。
• 对英国生物样本库500K数据集的全基因组测序分析发现了两个新罕见变异。
• 识别出多种可调整的生活方式和环境因素,与BAG相关。
• PheWAS显示脑年龄差距(BAG)与多系统疾病风险相关。
• BAG水平较高的人与精神和神经系统疾病的易感性关联最强。
摘要
引言:加速的大脑衰老,体现在更大的脑年龄差距(BAG)上,已被认为与神经退行性和精神疾病易感性增加有关,但其遗传基础、可改变因素以及更广泛的健康影响仍未确定。
目的:精确估算脑年龄,并系统性研究与加速脑衰老相关的遗传结构、生活方式和环境决定因素,以及系统性疾病风险。
方法:利用常规收集的磁共振成像数据,我们应用DenseNet模型估算脑龄,并将BAG作为衰老速度的生物标志物计算。我们分析了英国生物样本库的50万全基因组测序数据,阐明BAG的基因组结构,同时捕捉了两者的共同特征以及罕见变异,并利用AlphaFold3评估由错义突变引起的蛋白质结构改变。我们采用多重线性回归,考察BAG与人口统计学、生活方式、环境及端粒长度的关联。我们开展了一项现象范围关联研究(PheWAS),以探讨与BAG相关的多系统疾病风险。
结果:在共42,385名参与者中(平均标准差年龄657.7岁;女性52.8%),脑年龄模型以平均绝对误差2.49年估算BAG。全基因组测序发现了两个新的BAG相关非编码变异、具有暗示关联的KIAA0513中罕见错义变异,以及PAX6显著增强子DNase高敏感位点(DHS)。结构建模揭示了错义突变导致的蛋白质改变,暗示了大脑加速衰老的潜在机制。此外,不健康生活方式、不利环境暴露和端粒长度缩短与BAG相关。PheWAS分析显示,69种疾病与BAG显著相关(心率:每BAG年1.03--1.39例),其中精神和神经系统疾病排名最高,其次是心血管和代谢疾病。结论:本研究整合了神经影像学、基因组学、问卷和病历,为理解大脑衰老的多因素机制和指导精准预防策略提供了全面的框架。
引言
人类大脑在衰老过程中经历结构和功能的变化,但偏离正常大脑衰老模式的行为与加速衰老和病理性改变有关1。为了捕捉这些偏差,引入了"脑年龄差距(BAG)"这一定量概念2,定义为个体预测大脑年龄与其实际年龄之间的差异。BAG作为检测衰老相关恶化和量化加速衰老速率的有前景生物标志物。较高的BAG被认为是认知障碍和神经退行性疾病的关键风险因素3,4。例如,在阿尔茨海默病的临床前阶段,通过BAG检测到的微妙结构变化可能反映早期神经退行性变化5,表明BAG有助于识别高风险个体并指导早期干预策略。 鉴于BAG作为脑老化标志物的日益广泛应用,许多基于数据的数据驱动的脑年龄估计模型被开发出来,主要依赖磁共振成像(MRI)6,7。早期研究主要采用传统机器学习方法,如支持向量回归8和高斯过程回归9。然而,这些方法通常依赖手工特征提取,难以模拟脑成像数据中的复杂非线性关系,且处理高维输入的能力有限10。因此,深度学习作为一种强大的替代方案出现,以卷积神经网络(CNN)6为代表,它将特征提取和预测整合在统一框架内11,12。这使得自动学习层级表征成为可能,显著增强了捕捉复杂结构和功能大脑模式的能力,并提高了预测准确性13,14。在深度学习模型中,DenseNet 通过其密集连接结构提供了独特优势,实现了高效的特征重用和稳健的梯度传播。该架构使模型能够捕捉细致的局部细节,如灰质边界,同时整合大脑衰老的全局模式,这在检测细微病理变化和实现更精确的脑年龄估计方面尤为有效。 随着脑年龄建模技术的进步提升了BAG估计的精度,理解导致大脑衰老的因素对于制定针对性干预措施以降低年龄相关疾病风险至关重要。遗传因素在大脑衰老中起着关键作用,识别相关变异对于揭示正常和病理性大脑发育以及认知衰退背后的生物通路至关重要。
尽管全基因组关联研究已识别出数百个与BAG相关的常见和低频率变异12,15--17,但这些变异仅解释了遗传率的中等比例12,其中相当一部分集中在非编码区域,模糊了它们的功能作用,并使因果基因的解释变得复杂18。罕见变异(RV),尤其是编码区效应量大的变异,可能部分解决这种"缺失遗传性",并通过指出潜在治疗靶点来澄清疾病病理生理19,20。生物样本库中的大规模全基因组测序(WGS)研究现使得系统性探索脑衰老中的罕见变异成为可能;然而,很少有研究利用这些资源来剖析其生物学影响。除了遗传因素外,生活方式选择和环境暴露与大脑衰老密切相关,如低体力活动21、吸烟21、饮酒22和环境污染23,24。端粒长度也与大脑体积和整体认知相关,凸显了其在大脑衰老机制中的作用25。 为了更好地理解BAG的临床相关性,有必要考察其在多种健康状况中的关联。现象组全关联研究(PheWAS)提供了一种无偏见的方法,系统地识别BAG与多种疾病表型之间的联系,可能揭示假设驱动研究中未被识别的关联26。尽管此前研究已提出脑部衰老与神经退行性疾病11、代谢疾病27和心血管疾病28等特定疾病之间存在关联,但尚未对普通人群进行全面的BAG综合PheWAS检测。 本研究基于英国生物样本库队列的综合神经影像学、遗传学、生活方式、环境和健康结局数据,开发了针对脑年龄预测的定制框架,并系统性地调查导致脑老化的因素及其临床后果。首先,利用应用于T1加权MRI数据的深度学习模型,精确估计脑年龄,并推导BAG作为脑老化的定量生物标志物。其次,利用英国生物样本库50万全基因组测序数据集阐明BAG的遗传结构,涵盖常见和罕见变异的影响。第三,评估可调节的生活方式因素、环境暴露和端粒长度与BAG个体间变异性的关联。第四,通过进行PheWAS研究,探讨BAG与多系统疾病结局之间的关联。这些综合分析旨在加深我们对大脑衰老多因素性质及其对疾病风险影响的理解。
方法
研究对象
所有分析均使用英国生物库(https://www.ukbiobank.ac.uk/)数据进行,该研究是一项涉及50万参与者的大规模前瞻性队列研究,涵盖社会人口特征、生活方式、环境因素、健康状况、生物样本及去识别遗传信息,并定期随访。 在英国生物样本库参与者中,2014年至2021年间接受T1加权MRI扫描并通过标准化质量控制程序的42,391名患者纳入本研究29。英国生物样本库对T1加权结构MRI数据的预处理流程包括伪影校正、颅骨剥离和空间归一化至标准空间,随后实施严格的质量控制协议以确保数据可靠性。从该QC传递的图像数据集中,最终选出了42,385名具备完整年龄和性别信息的参与者,用于构建脑年龄模型。其中,截至2023年10月5日的随访数据可用参与者被纳入Cox比例风险模型,以评估BAG对脑老化相关疾病的预测能力。在全基因组测序分析中,过滤掉低质量变异和样本(详见下文相应部分),纳入40,924名个体,进行编码变异和非编码变异的关联分析。此外,所有42,385名参与者都被纳入线性回归分析,以评估BAG与人口统计学、生活方式、环境暴露及端粒长度之间的关联。最后,PheWAS分析纳入了41,247名个体,以探讨BAG与广泛系统性疾病之间的关系
脑年龄估计深度学习模型的开发
在42,385名有脑影像数据的参与者中,共有34,352名未被诊断出精神和行为障碍(ICD-10:F代码)或神经系统疾病(ICD-10:G代码)的个体被纳入对照组12,代表无神经精神疾病的参与者。这些个体首先被随机分为训练集(n = 24,046;70%)以细化模型参数,以及一个保留组(n = 10,306;30%)。保留组进一步细分,2,061个体(20%)被分配到用于超参数调优的验证集,8,245个个体(80%)被分配到模型性能评估测试集。根据英国生物样本库的质量控制和预处理方案,从T1加权MRI扫描中提取了与衰老相关的特征29。我们利用了3D DenseNet30,这是一种受监督的深度特征表示主干,擅长从神经影像数据中提取与衰老相关的特征,构建了一个脑年龄估计模型。其主要优势在于能够整合不同层次的视觉特征,形成多尺度的强大特征,捕捉多样化的衰老模式。为此,我们随机初始化了一个3D DenseNet骨干作为MRI特征提取器,随后使用多层感知器(MLP),其中一层隐藏为预测头,将高维特征转换为脑年龄。我们以对照组个体的年代年龄为标签,使用均方误差作为损失函数,并通过多轮反向传播动态调整模型参数。
基于3D DenseNet的深度学习模型从神经影像数据中提取与衰老相关的特征作为输入,而且采用单层MLP作为预测头,将高维特征转换为脑年龄估计。网络从一个7×7卷积层开始,包含64个通道,步幅为2,随后是四个稠密块。在这些块中,多个瓶颈层(Bottleneck layer)在3××3个三维卷积之前,包含1:1卷积以降低维度。过渡层配备1x1卷积和×2个平均2倍的池化,步幅为2,连接密集块以管理维度。一个全局平均池层在最终稠密块后对特征图进行浓缩,形成一个完全连通的层,输出1000个特征。这些特征随后被输入预测头,即单层MLP用于预测脑年龄。DenseNet121的架构高效,包含约120个卷积层和4个平均池化层,实现深度与计算效率之间的平衡。该模型配置为三维空间维度,一个输入通道(用于灰度MRI)和一个输出通道(用于回归磁头)。我们采用了初始学习率为 56 的 Adam 优化器。训练跨越130个纪元,采用学习率衰减计划(每30个纪元衰减因子为0.3),以提升收敛性。采用了权衰减系数为0.001的L2正则化以减轻过拟合。3 为了量化参与者的大脑衰老速率,我们按时间年龄回归大脑年龄,并计算残余值,定义为"BAG",其中BAG大于0表示加速衰老。为了进一步识别对模型预测有贡献的区域,我们首先使用MONAI(https://arxiv.org/abs/2211.02701)中实现的引导反向传播和SmoothGrad方法生成了全脑显著性图。相应处理后的T1加权MRI扫描随后通过FreeSurfer的recon-all流程处理,实现全脑分割。最后,将获得的显著性图谱投影到皮层分隔层(aparc.a2009s)和皮层下分段(aseg)上,以识别表现出高显著性的解剖区域。
验证脑年龄估计及BAG临床关联
模型性能通过平均绝对误差(MAE)和皮尔逊相关系数(r值)进行评估,较低的MAE表示预测准确性更高。为进一步评估预测效用,采用受试者工作特征(ROC)曲线和Cox回归得出的曲线下面积(AUC)来比较模型表现。作为对比,使用同一数据集分裂种子训练了一个简单全卷积网络(SFCN)14,这是一个专门设计用于脑年龄预测的模型,并与我们基于DenseNet的模型进行了性能比较。 随后,应用了Cox比例风险模型来研究BAG与神经系统疾病(包括"谵妄性痴呆与遗忘性及其他认知障碍")、痴呆、帕金森病、异常运动、步态异常之间的关联,从而验证了BAG作为大脑衰老的有力生物标志物。疾病定义来源于Phecode图谱31,32。随访从MRI采集当天开始,持续至首次出现结局、死亡或研究期结束(2023年10月5日),以先发生者为准。所有模型均调整了MRI扫描时的年龄、性别、教育、族裔、收入、身体质量指数(BMI)、吸烟和饮酒状况。使用Cox模型,采用相同的协变量调整,评估了BAG与全因死亡率的关联。
对50万名英国生物样本库参与者的编码和非编码变异进行全基因组测序
我们使用了490,549名英国生物样本库参与者(英国生物样本库字段#23374)的WGS数据的pVCF格式文件,并使用vcf2agds toolkit转换为带注释的基因组数据结构(aGDS)文件34。我们在之前对英国生物样本库WGS数据的研究中遵循了相同的质量控制程序33。我们保留了所有通过率为QC标签且AAScore大于0.5的变体,其中AAScore由英国生物样本库用于基因型调用的GraphTyper软件生成。变异体进一步筛选,排除了未通过哈代-温伯格平衡检验或呼叫率低于90%的变异34。 对于BAG项目,我们首先应用了线性回归模型,调整了年龄、年龄2、性别以及前10个祖先主成分(PC)。残差随后对残差进行了基于等级的逆正态变换,并利用原表型的标准差进行重新标度。随后,我们拟合了一个线性混合模型(LMM),用于等级归一化残差,考虑年龄、年龄2、性别、前10个祖先PC以及一个经验推导的稀疏遗传亲缘关系矩阵(GRM)的方差成分,以处理群体结构和亲相关性35。 单一变异分析中,我们计算了所有次等位基因计数(MAC)10的变异个体值。基因中心编码分析变异,包括单核苷酸变异(SNVs)和滴落物,提供了七个编码功能类别的蛋白质编码基因,包括假定功能丧失(止增益、止损和剪接)变异、错义变异、破坏性错义变异、假定功能丧失和破坏性误义变异、同义变异、蛋白质截断稀有变异(停止增益、止损, 剪接、移位缺失和移位插入),以及截断蛋白的罕见变异和扰乱性误义罕见变异。功能丧失、误义、同义和蛋白质截断的稀有变异由GENCODE VEP类别定义36。破坏性变异由MetaSVM37进一步定义,该模型衡量错义突变的有害性。对汇总的罕见常染色体变异(次等位基因频率MAF<0.1%)进行了变异组分析38。对于每个变异组,我们进行了负担检验,按照参考文献中描述的方法,对所有变异赋予平等权重38,39。 以基因为中心的非编码分析提供了八个遗传类别的SNV,包括启动子或增强子与CAGE或DNase高敏位点(DHS)位点叠加、未翻译区(UTR)、蛋白质编码基因的上游、下游以及非编码RNA基因。启动子RV定义为转录起始位点+/- 3千碱基(kb)窗口内的RVs,且与CAGE或DHS位点重叠。增强子RV定义为GeneHancer预测区域内与CAGE或DHS站点重叠的RV40--43。我们通过GENCODE变异效应预测因子(VEP)类别定义UTR、上游、下游和ncRNARVs44,45。对于UTR掩膜,我们包含5′和3′ UTR区域的红谷。对于ncRNA掩膜,我们包括外显子和剪接ncRNA的RV。我们考虑了Ensembl提供的前七类蛋白质编码基因46和GENCODE提供的ncRNA基因44,45。对于每个变异组,我们进行了负担检验,按照参考文献38,39描述的方法,赋予所有SNV等权重。 为了进一步识别与已知变异无关的全基因组显著关联,我们利用STAAR管道进行了条件分析,旨在识别39。首先,我们通过包含文献中识别出的BAG相关变异来选出已知变异体15,16。采用以下逐步选择策略以确定一部分独立变异,用于条件分析调整:
(1)计算已知变异列表中所有变异的个体值,并选择每条染色体中最重要的变异。(2) 在后续每一步计算所有剩余变体的值,同时对先前选定的变体进行条件,限制在每个变体周围的特定区域(± Mb窗口)。3)选择条件值最小且低于预定截止值的变体 4)重复步骤2--3,直到无法再选出其他变体为止。4 在全基因组测序分析中,我们识别出独立变异的子集,计数为22个(补充表1)。最后,我们通过调整位于分析单元扩展区域(±1 Mb窗口)内的选定变异,计算出每个显著分析单元的条件值。 此外,我们在基因表达全集(GEO,https://www.ncbi.nlm.nih.gov/geo/)中的两个数据集中验证了该罕见变异。使用GSE63060和GSE63061数据集来研究阿尔茨海默病(AD)或轻度认知障碍(MCI)患者血液中的基因表达。GSE63060年,AD、MCI和CN组分别有145、80和104名参与者,而GSE63061组对应组规模为139、109和134。下载并使用级数矩阵和平台注释文件进行分析。我们进行了双侧独立样本t检验,分别比较认知正常对照(CN)与轻度认知障碍(MCI)以及认知正常对照组与抗焦虑,并通过箱型图可视化组别差异。为评估基因表达识别AD和MCI的判别能力,我们生成了ROC曲线,以评估其在区分患者与CN方面的性能。
误义罕见变异的蛋白质结构预测
为了进一步理解可能影响大脑衰老的罕见变异的机制,我们重点关注了预测会导致神经功能关键蛋白结构改变的错义变异。具体来说,我们从Uniprot数据库(https:// www.uniprot.org/)检索了该蛋白的野生型序列,并利用AlphaFold3(https://alphafoldserver.com/)预测错义突变引起的结构变化。每个预测折叠的整体置信度均使用预测TM评分(pTM)进行评估,值高于0.5表示整体结构总体可靠。随后,利用均方根偏差(RMSD)量化野生型与突变蛋白之间的结构差异,以评估加速脑老化可能带来的功能影响。此外,FoldX被用来估算突变引起的热力学影响,通过计算折叠自由能(DDG)的变化,补充了其对蛋白质稳定性影响的见解。
人口统计学、生活方式、环境因素和端粒长度与BAG的关联
我们通过多重线性回归分析了14个变量之间的关联,包括人口统计学(性别、教育和收入)、生活方式(BMI、吸烟和饮酒)、环境因素(年均NO2、NOx、PM10、PM2.5、绿地百分比、水分百分比和距离海岸距离)以及端粒长度,使用多重线性回归。缺失值通过R中的"mice"包进行补值,连续变量和类别变量分别置入。 包含变量的详细信息如下。性别被分为男性和女性。教育分为高中或低年级和大学或更高阶段,基于完成全日制教育的年龄是否超过16岁。此前,收入按平均家庭总收入分为五个类别税收包括少于18,000英镑、18,000至30,999英镑、31,000至51,99英镑、52,000至100,000英镑及超过100,000英镑。BMI还被重新分类为:体重过轻(≤18.5 kg/m2)、正常(18.5--24.9 kg/m2)、超重(24.9--29.9 kg/m2)和肥胖(> 29.9 kg/m2)。吸烟和饮酒状态包括从未、以前和当前。
环境暴露数据包含若干连续变量,均为2010年年平均值估计。空气污染物浓度,包括二氧化氮(NO2)、氮氧化物(NOx)、直径≤10 lm的颗粒物(PM10)和直径≤2.5 lm(PM2.5)颗粒物,采用了欧洲空气污染影响队列研究(ESCAPE)项目中开发的标准化土地利用回归(LUR)方法进行建模。绿地百分比和水量百分比分别基于参与者居住地址周围1000米和300米缓冲区内的绿地和水域比例推导。距离海岸指的是从居住地到海岸的距离,单位为公里。为更直观地理解影响,我们计算了每个环境因素的平均差和标准差(SD),并报告了每增加一个标准差(NO2 7 lg/m3,NOx 15 lg/m3,PM10 2 lg/m3,PM2.5 1 lg/m3,绿地 22%,水 3%), 距离海岸27公里)。 端粒长度通过莱斯特大学多重定量聚合酶链反应(PCR)测量,DNA取自外周血白细胞。T/S比值表示相对端粒长度,是通过比较端粒特异序列(T)与单拷贝参考基因(S)扩增情况,相对于合并的校准样本计算得出的。本研究采用对数变换后的Z标准化T/S比(字段#22192),并修正技术因素,作为连续变量研究端粒长度与BAG之间的关联。 我们使用多线性回归模型评估潜在风险因素与BAG之间的关联。对于性别变量,我们仅调整了年龄,以评估其与BAG的关联。对于人口统计变量(教育和收入)和生活方式因素(BMI、吸烟和饮酒),我们将所有变量纳入单一模型,并相互调整以评估其独立关联。为检验这些关联的稳健性,我们还进行了敏感性分析,排除MRI扫描后1至2年内被诊断出神经系统疾病的参与者,以减少潜在的反向因果关系。对于环境暴露(NO2、NOx、PM10、PM2.5、绿地百分比、水分百分比和距离海岸距离)和端粒长度,我们为每个变量拟合了独立模型,并调整了年龄、性别、教育、收入、BMI、吸烟和饮酒等年龄顺序,以评估它们与BAG的关联。
BAG与多系统疾病发病率的关联
为评估BAG与多系统中综合健康结局的关联,我们采用Cox比例危害回归分析,针对突发疾病进行了PheWAS。疾病结局采用Phecode Map 1.2b1版本定义,该图基于国际疾病分类(ICD)第9版和第10版,对1695种疾病进行了分类31,32。详细的Phecode定义可在 https://phewascatalog.org/ 访问。疾病诊断代码来自住院医院记录、国家癌症登记处和国家死亡登记处。为确保模型的稳健性,排除了事件少于100次的疾病,鉴于我们关注突发疾病,也省略了怀孕相关疾病。最终,PheWAS分析共纳入了474种疾病。对于PheWAS中的每个健康结局,随访从出生开始,持续到结局首次出现、死亡或研究期结束(2023年10月5日),以先到者为准26。为确保发现的稳健性,采用MRI扫描日期作为基线,进行了敏感性分析。协变量与模型评估部分描述的Cox模型中指定的指标一致。为控制多重检验,我们采用了Bonferroni校正进行家族误差控制和Benjamini-Hochberg FDR调整。所有P值均为双侧。脑年龄建模在Python(v3.8.10)中完成,其他所有分析均在R(v4.4.2)中完成。
道德伦理
英国生物样本库获得西北多中心研究伦理委员会(MREC)批准,作为研究组织银行(RTB)的认证。研究人员无需单独的伦理审查,可以在RTB批准(申请号91486)下开展工作。
结果
脑年龄模型的开发与验证
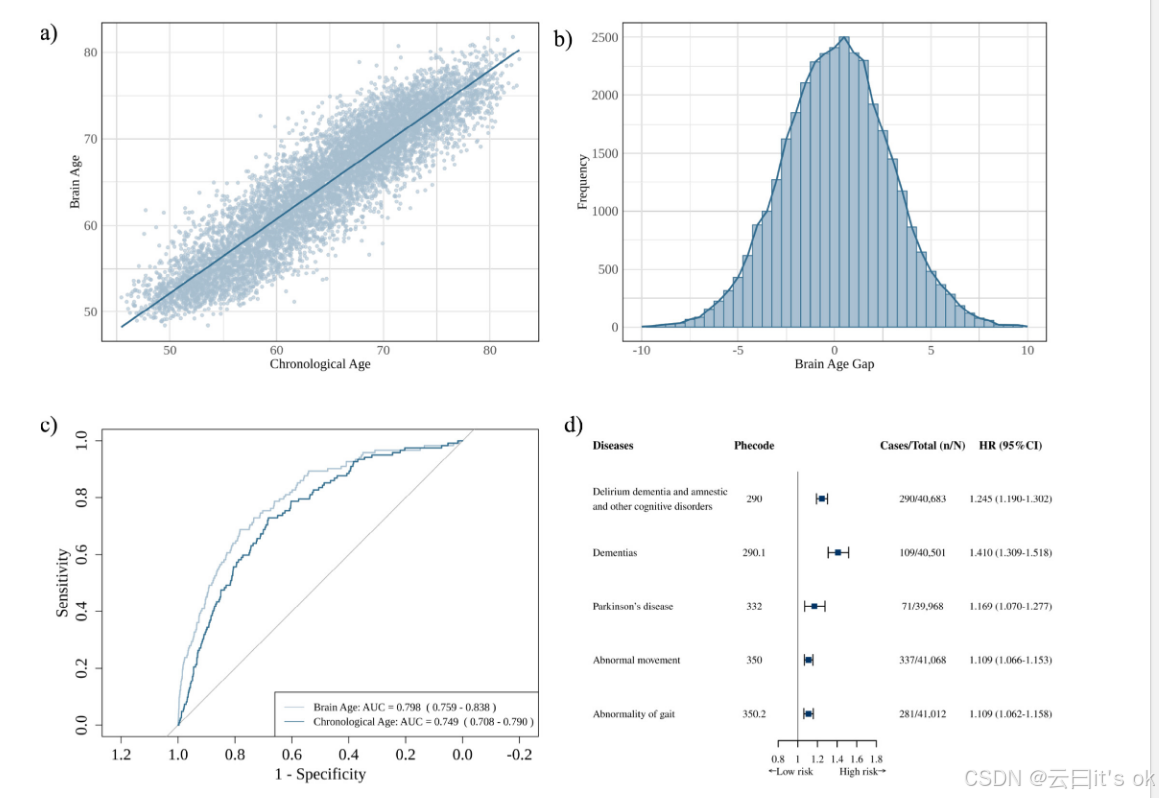
本研究共纳入了42,385名具有完整年龄和性别信息的参与者,平均年龄为65岁±7.7岁,女性占52.8%。人口特征见表1。用于脑年龄估计的监督深度学习模型实现了2.49年的MAE,并显示测试组中与年龄的年龄有强烈线性关系(皮尔逊相关系数为0.92)(见图1a)。相比之下,基于SFCN的模型准确率较低(MAE = 2.89年,r = 0.88,补充图1)。随后,BAG定义为将估计脑年龄与时间年龄回归所得的残差,这些残差在34,352名受试者的整体对照组中呈正态分布(见图1b)。在预测全体42,385名参与者的发作痴呆时,脑年龄和实际年龄分别为0.798(95%置信区间0.759--0.838)和0.749(95%置信区间0.708--0.790),脑年龄表现显著优于0.001,<见图1c。Cox比例风险模型显示,较高的BAG与神经系统疾病风险增加显著相关,心率范围为1.109至1.410。痴呆症的关联最为显著(HR 1.410,95% CI 1.3091.518)(见图1d)。此外,较高的BAG对应更高的全因死亡风险,每增加一年心率为1.100(95%置信区间1.0711.129)(补充表2)。按性别分层分析显示,女性(HR 1.107,95% CI 1.060--1.156)和男性(HR 1.095,95% CI 1.0591.132)之间存在一致的关联,进一步支持 BAG 作为大脑健康与死亡风险的有效生物标志物。此外,还使用显著性图谱评估不同脑区对BAG预测的贡献(补充图2)。我们的发现显示,右下颞回、右中颞回、右舌回和右中枕回相关,同时右脑白质、右小脑皮层和左侧心室也有贡献
常见和罕见遗传变异与BAG的关联
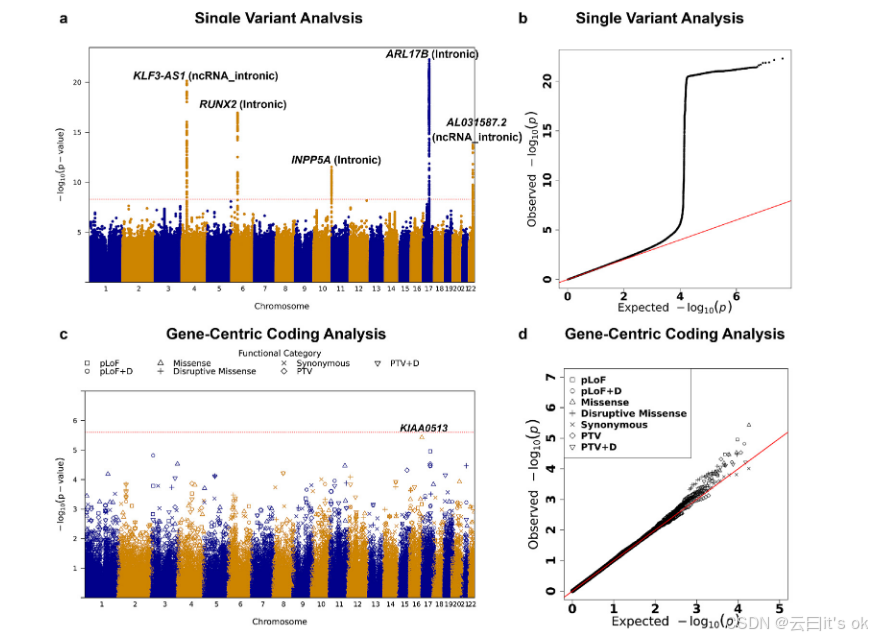
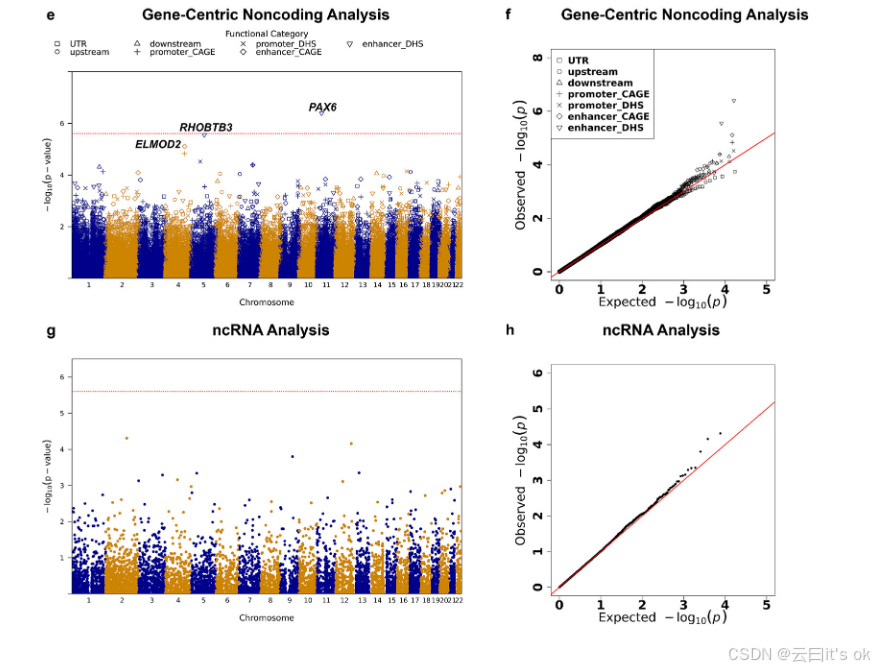
我们进一步通过对大型测序研究和功能性注释的综合分析,使用STAARpipeline对常见和罕见遗传变异进行了全面的功能知情关联分析39,47(方法,补充表3)。该分析包括对英国生物样本库中40,924名年龄在44至83岁的个体的WGS分析,其中52.6%为女性。 WGS分析包括单个常染色体变异的单变异关联分析(MAC ≥ 10)和罕见常染色体变异的变异组分析(MAF < 0.1%)。对于变异集分析,STAARpipeline提供以基因为中心的蛋白质编码基因分析,使用七个编码变异功能类别;七个非编码变体功能类别及稀有变体在非编码RNA(ncRNA)基因中(方法)。在单一变异分析中,3370个变异达到了全基因组显著关联,达到48水平(图2a--b,补充表4)。在对已知BAG相关变异进行条件化(方法,补充表1)后,3370个关联中有88个仍保持在(补充表4)水平的显著性。这88个条件显著的关联分布在两个遗传区域,包括RUNX2的内含子区和LRRC37A3附近的基因间区。在对RVs的基因中心编码分析中,尽管没有蛋白质编码基因达到0 05 20 000 2 50 10 6的全基因组显著阈值,但观察到KIAA0513中的错义变异与BAG之间存在暗示性关联(p = ,接近预测显著阈值)(图2c--d,补充表5)。KIAA0513基因误义RV中最显著的变异rs200321460,显示该关联由多个误义随机视角的累积效应驱动(补充表6)。目前在KIAA0513中1 Mb更广的区域内,没有已知的BAG相关变异体(补充表1),表明该发现与任何报告的BAG相关常见变异体无关。 黄荣、李志、袁荣等。《高级研究杂志》xxx (xxxx) xxx 与暗示性遗传信号一致,补充图3展示了KIAA0513的探索性外部分析,包括两个独立的阿尔茨海默默病血液转录组数据集(GSE63060和GSE63061)中的差异表达和分类表现。KIAA0513表达在MCI和AD样本中均显著上调,均较CN对照组(补充图3a和b),所有p值均<0.05。此外,KIAA0513展示了在两个独立数据集中区分MCI和AD与CN样本的能力(补充图3c和d)。在GSE63060数据集中,区分阿尔茨海默病与CN的AUC为0.629(95%置信区间0.559--0.699),MCI与CN的AUC为0.689(95%CI 0.613--0.765)。GSE63061数据集中,阿尔茨海默症与CN的AUC为0.581(95%置信区间0.513--0.649),MCI与CN的AUC为0.613(95%CI 0.5410.684)。 在对BAG进行基因中心非编码分析中,PAX6和BAG的增强子RVs与PAX6和BAG的DNase高敏感(DHS)位点叠加,在Bonferroni校正水平上被检测到全基因组显著关联(方法,图2e--f,补充表5)。PAX6基因中带有BAG的增强子DHSRVs最显著变异,有个体表明该关联由多种增强子DHSRVs的累积效应驱动(补充表7)。在PAX61 1 Mb更广区域内,没有已知的BAG相关变异株(补充表1),表明该发现与任何报告的BAG相关常见变异无关。针对基因中心的非编码分析未检测到全基因组显著水平上的显著关联(见图2g--h)。
错义变体的结构影响
鉴于KIAA0513的罕见变异代表错义突变,我们进一步研究了它对蛋白质结构的影响。野生型蛋白序列从UniProt数据库检索49,并利用AlphaFold350(方法)预测了野生型和突变体结构。结构建模显示野生型和突变KIAA0513结构均具有高度可靠性,预测模板建模(pTM)得分超过0.5阈值,这是被广泛接受的结构准确预测基准。为了定量评估突变的结构后果,我们采用了在PyMOL中的"align"函数,均方根偏差(RMSD)值为2.126 Å,显示出显著的结构发散。利用FoldX进行计算机模拟稳定性预测显示,突变体的DDG值范围为−3.12 kcal/mol(略微稳定)至8.83 kcal/mol(强烈不稳定),表明蛋白质某些构象存在显著不稳定。7 值得注意的是,206--252位的残基段缺乏重叠(图3a),246位甘氨酸被精氨酸替代导致a螺旋构象局部扰动(图3b)。以往研究表明,KIAA0513在包括小脑、皮层、海马体、桥脑、壳囊和杏仁核在内的关键脑区高度表达,凸显了其在神经功能中的潜在作用51。观察到的结构变化可能通过扰动关键分子相互作用或信号通路,导致功能缺陷,最终加速认知相关疾病的发生和进展。
人口统计学、生活方式、环境因素及端粒长度与BAG相关的因素
通过多重线性回归,我们发现人口统计学、生活方式和环境因素以及端粒长度与BAG显著相关(方法,图4及补充表8)。男性比女性更可能经历年龄加速(效应量(b)0.142年,95%置信区间0.088--0.197)。不健康体重,尤其是体重过轻(b 0.577年,95%置信区间0.192--0.963)和肥胖(b0.146年,95%置信区间0.071--0.222),与较高的总体重(BAGs)相较正常体重(18.5--24.9 kg/m2)相关。既往和当前吸烟和饮酒分别与神经性吸烟者和从不饮酒者更高的BG相关,b年龄范围为0.199至0.881岁。排除MRI扫描后1至2年内被诊断为神经系统疾病的参与者的敏感性分析显示,这些关联保持一致(补充表9)。暴露于更高浓度的NOx(b 0.034年每15 lg/m3,95%置信区间 0.007--0.061)和PM2.5(b 0.028年每1 lg/m3,95%置信区间 0.003--0.053)与加速衰老相关。此外,每靠近海岸27公里,BAG增加0.067年(95%置信区间0.0410.093),表明靠近海岸的大脑加速衰老。端粒长度较短与BAG较高相关(b −0.071年,95%置信区间−0.099-−0.043)。
BAG与多系统疾病发病的关联
为系统评估BAG与多器官系统疾病发生率的关联,我们使用Cox比例风险模型对41,247名个体进行了PheWAS分析。共有474种至少100例的疾病被划分为14个疾病组(见图5a)。其中162种疾病在Benjamini-Hochberg假发现率(FDR)<0.05(补充表10)时达到显著性,69种疾病在Bonferroni校正后显著(< 005 474 1 05 10 4),风险比显示BAG每额外一年风险增加2.6%至38.8%(图5b)。值得注意的是,大多数被发现的疾病属于循环系统、内分泌/代谢系统、精神疾病和神经系统疾病。以MRI扫描日期为基线的敏感性分析结果也支持我们的主要发现(补充表11)。 BAG与神经系统和精神疾病显著相关。较高的BAG与精神障碍风险增加相关,包括"谵妄型痴呆及遗忘症及其他认知障碍"(HR 1.227,95% CI 1.176--1.280)、痴呆(HR 1.379,95% CI 1.286--1.479)、神经系统疾病(HR 1.111,95%)CI 1.076--1.146),以及改变的精神状态(HR 1.166,95% CI 1.1071.229)。此外,BAG与神经系统疾病(HR 1.188,95% CI 1.109--1.273)和多发性硬化症(HR 1.388,95% CI 1.3051.476)显著相关。 图2。与脑年龄差(BAG)相关的变异的曼哈顿图和Q-Q图。(a) 全基因组测序(WGS)单变异分析的曼哈顿图。横线表示WGS单变异分析中全基因组显著水平(b)分位数-分位数图。(c) 用于WGS的以恒为中心编码分析的曼哈顿图。水平线表示全基因组负担值阈值为 。显著阈值通过使用Bonferroni修正(d)二分位数图进行多重比较定义,用于WGS基因中心编码分析。(e) WGS基因中心非编码分析的曼哈顿图。水平线表示全基因组负担值阈值,显著阈值通过使用Bonferroni修正(f)分位数图进行多重比较定义,用于WGS基因中心非编码分析。(g)WGSncRNA分析的曼哈顿图。横线表示全基因组负担值阈值为 。显著阈值通过使用Bonferroni修正(h)分位数图进行多重比较定义,用于WGS ncRNA分析。在面板a、c、e和g中,染色体编号用点的颜色表示。在所有面板中,伯登是双面考验。 黄荣、李志、袁荣等。《高级研究杂志》xxx (xxxx) xxx 除了精神和神经系统疾病外,BAG水平升高还与其他器官系统多种疾病风险增加相关。具体来说,内分泌/代谢疾病中,BAG升高与糖尿病风险增加相关(HR 1.114,95% CI 1.097--1.131)和糖尿病视网膜病变风险增加(HR 1.269,95% CI 1.196--1.347)。循环系统方面,BAG与高血压相关(HR 1.050,95% CI 1.042--1.057)、缺血性心脏病(HR 1.030,95% CI 1.017--1.043)和脑血管疾病(HR 1.118,95% CI 1.093--1.143)。
讨论
在这项研究中,我们开发了一个全新的整体整合多模态框架,能够从常规MRI数据中准确估算脑年龄。对英国生物样本库500K大规模全基因组测序数据的遗传分析揭示了此前未报道的关联,包括RUNX2和AL031587.2中非编码的常见变异,这是一种KIAA0513中暗示的误义罕见变异,以及PAX6的增强子DHS罕见变异,暗示了可能加速大脑衰老的机制。我们还识别出若干可调整的风险因素,包括不健康的生活方式和不利环境暴露,强调了干预的潜力。此外,PheWAS分析显示BAG与认知和神经退行性疾病以及广泛的内分泌/代谢和循环系统疾病有显著关联。这些发现综合起来,提供了BAG相关遗传和可变决定因素及其广泛健康影响的全面概述。 近年来,越来越多的研究将先进的深度学习模型应用于利用神经影像数据进行脑年龄预测6,7。我们基于DenseNet的深度学习模型在预测T1加权MRI的脑龄方面表现出比较性能,MAE达到2.49年,准确性超过了传统卷积架构6,7,52。基于显著性图谱的模型解读揭示了大脑区域对BAG相关变化的贡献差异。这种区域贡献的差异与先前报告的下颞回53,54、舌回54和枕中回55的功能改变、白质微结构衰退56、右小脑皮层体积减少57以及左侧室肿大58相符,支持模型在捕捉衰老相关信号方面的可靠性。提取的特征可能反映与大脑衰老相关的微观结构变化,如神经元和突触的渐进性丧失59、脱髓鞘化以及血脑屏障破坏60,这些可能源于潜在的病理生理过程。在DenseNet中,促进了高效的特征重用和梯度流动,促进了网络中层级特征的整合,并能够检测到其他模型中可能被稀释或丢失的微妙病理或年龄相关信号。通过提供整体且细致的脑结构表征,我们的模型不仅具备卓越的预测性能,还作为量化脑年龄偏差的有力且临床价值较高的工具,支持对BAG与遗传、生活方式、环境及多系统疾病因素关联的后续分析。需要注意的是,由于扫描仪协议、采集参数或群体特征的差异,不同队列的表现可能有所不同;然而,这并不影响该模型在英国生物样本库队列中机制性和关联分析中的效用,未来研究可能会利用结构域适应61或协调62策略来增强跨队列的泛化性。9 为了理解大脑衰老的生物学基础,我们利用整合功能注释的WGS数据对其遗传结构进行了描述。单一变异分析确认了已知位点,并鉴定出两个与BAG相关的全基因组显著新变异,包括RUNX2中的内含子变异和AL031587.2中的内含子ncRNA变异。尽管RUNX2此前已被关联于脑容量63、皮层厚度64--66和白质微观结构67等区域神经影像特征,但这些区域层面的发现为我们新颖的观察提供了生物学支持:RUNX2与英国生物样本库中的BAG相关,BAG代表了全球脑形态的综合指标。值得注意的是,作为参与成骨细胞分化和骨骼发育的转录因子,RUNX2可能通过多条途径影响大脑衰老68,69。研究表明,RUNX2可能通过调控骨钙素及其他影响神经发育、突触可塑性和神经保护的骨源因子的表达,间接调节大脑健康70。这些骨骼衍生因子是骨骼与大脑双向通信的关键中介71。由于RUNX2调控负责产生许多这些分子的骨细胞的分化,它可能代表了连接骨骼发育通路与大脑衰老过程的潜在分子联系。这一观点不仅加深了我们对RUNX2与大脑健康关联的理解,也将骨骼发育转录因子置于影响神经功能和衰老的系统性内分泌调控的更广泛框架中。同样,AL031587.2变异存在于PICK1基因中,该基因与白质完整性63和显微结构67、脑容量63和皮层厚度66相关,但新近与BAG相关。 值得注意的是,我们的罕见变异组分析发现了两个此前未报道的与KIAA0513中误义罕见变异的关联,这些变异与侧脑室颞角的体积相关72,参与神经可塑性和细胞骨架调控51;以及增强子DHS罕见的PAX6变异,其中据报道与PHF-tau测量73、神经质74--76、抑郁症状77,78、幸福感(生活满意度、积极情感)77和失眠79相关。在我们基因中心的RV分析中,利用暗示显著阈值,我们识别出两个此前未在1 Mb区域内报告的显著关联体10,包括增强子DHS罕见变异体RHOBTB3和增强子CAGE稀有变异体ELMOD2(补充表5)。这两个基因均被认为与神经和认知结局有关73,80。这些关联似乎由多个 RV 的累计效应,因为基于集合的值明显小于该集中最显著的单一变体(补充表12和13)。总体而言,这些发现表明,RV可能在阐明大脑衰老的遗传结构中发挥关键作用,揭示之前聚焦于常见变异的GIS可能被忽视的效应。
基于已识别的罕见变异关联,我们探讨了KIAA0513错义突变的潜在后果,这些突变可能诱导局部结构扰动和热力学变化,影响其三维构象和神经元功能。虽然这些结构和能量预测提供了有用的机制见解,但在缺乏实验验证的情况下仍属假设,需要进一步的生物学研究来确认已识别变异的效果。先前研究表明,KIAA0513在多个脑区高度表达,并与KIBRA、HAX-1和INTS4等与神经可塑性、细胞凋亡和细胞骨架调控相关的蛋白质相互作用51。具有特别临床意义的是,KIAA0513反复被认为与阿尔茨海默症的发病机制有关81,82。与上述发现一致,我们的外部验证显示,MCI和AD患者的KIAA0513调均显著上调,均高于对照组。基于这些发现,KIAA0513可能成为药物再利用和干预策略的一个有前景的治疗靶点。 除了遗传影响外,可改变的生活方式、环境因素和端粒长度也与BAG相关,并成为潜在的干预靶点。以往的研究一贯表明,保持健康体重83,84,减少烟草和酒精使用21,83,85可以通过提升脑网络的效率或容量、促进神经代偿以及增强大脑对年龄或疾病相关损伤的耐受能力来促进大脑健康86。暴露于有害环境因素,包括空气污染和低绿地可用性,与大脑年龄增加相关87,88。值得注意的是,我们观察到一个有趣的发现:靠近海岸与BAG较高相关。与我们的结果一致,Tari等人89报告称,居住在靠近海岸线的个体完成"开辟步道任务-B"所需时间更长,且流体智力较差。这种负相关性可能归因于更高的贫困、教育机会减少、社会投入减少以及沿海地区更严重的社会隔离,这些因素共同导致认知能力下降89,90。端粒长度较短还与脑容量减小和阿尔茨海默病相关91,92,支持其与神经退行性过程的相关性,这与我们的研究结果一致。其潜在机制可能涉及免疫衰老伴随炎症加剧93、小胶质细胞衰老损害淀粉样蛋白清除94以及加速淀粉样蛋白和tau病理的基因组不稳定性95,表明端粒长度可能作为监测长期脑衰老的有用标志。总体而言,解决更广泛的社会问题,如减少社会经济不平等96、抗击空气污染23,24以及改善住宅绿地97,同时监测端粒长度等生物标志物,可以减缓大脑衰老并指导预防医疗策略。 在表征BAG的影响因素后,我们进一步评估了BAG与该现象间的相关性,利用PheWAS评估了其临床意义。较为保守的Bonferroni和BenjaminiHochberg的FDR修正一致指出,较高的BAG与神经和精神疾病以及心血管和代谢疾病的风险增加相关,表明加速的脑部衰老可能反映了大脑以外更广泛的生物衰退。这些关联表明,可能同时驱动大脑和外周衰老的共同机制,如慢性炎症98、血管功能障碍99和代谢调节障碍100,101。这些发现共同强调了大脑衰老与系统健康的相互关联,并支持BAG作为多维生物标志物的价值,用于识别高风险人群中罹患多种衰老相关疾病。临床上,BAG可作为非侵入性生物标志物,识别多个器官系统中高风险个体,支持风险分层和早期干预。将BAG与传统临床评估相结合,有助于提升个性化监测并指导预防策略。12 本研究存在若干局限性。首先,遗传和影响因子分析在英国生物样本库参与者的一小部分中进行,这是一组健康的志愿者队列,主要为欧洲血统,这可能限制了我们发现对更多样化人群或不同医疗环境的推广性。英国生物样本库参与者通常更健康、更高受教育、年龄较大,且女性比例较高,这会影响观察到的效应大小,尤其是在社会行为和生活方式相关特征方面。例如,癌症和教育成就的效应量可能减弱,而咖啡摄入量或抑郁和焦虑的效应可能增加,尽管效应方向通常保持一致102。此外,像许多大型观察队列一样,英国生物样本库(包括其神经影像子队列)可能存在某些群体偏差。如果存在这些偏差,可能会影响BAG的分布和观察到的关联大小。虽然主成分和线性混合模型能够适当考虑遗传群体结构和亲缘关系,但它们可能无法明确模拟队列层面的选择过程,因此可能无法完全消除因非随机参与而产生的残余偏差。未来需要在更具异质性和代表性的队列中进行研究,包括不同祖先、年龄组和社会经济背景的个体,以评估这些遗传和环境关联是否更广泛地成立。尽管如此,已识别的BAG相关基因及其影响因素得到了先前研究的独立证据支持,进一步证实了我们发现的稳健性和有效性。其次,我们对生活方式和环境对BAG影响的分析是横断面的。环境暴露仅有单一历史年份(2010年)的数据,可能无法充分反映该队列的长期暴露情况,且可能因与MRI扫描时间不匹配而导致暴露错误分类。对于生活方式因素,现有数据的横断面性限制了因果推断,但排除MRI扫描后1至2年内出现神经系统疾病的参与者的敏感性分析显示,生活方式与BAG之间的关联依然稳健。
尽管存在这些局限,我们的研究仍展现了几个关键优势。首先,我们的研究利用先进的深度学习,利用广泛可用的T1加权MRI数据构建了一个准确的脑年龄预测模型。其次,我们对英国生物样本库500K数据集的全基因组测序分析,该数据集包含常见和罕见变异,并预测蛋白质结构变化,解决了我们对罕见遗传变异如何促成大脑衰老的理解空白。我们的研究显著扩展了对大脑衰老背后遗传结构的认识。第三,我们通过PheWAS评估了大脑衰老与多种疾病之间的关联。这是首批将加速脑老化与长期疾病风险联系起来的研究之一,涵盖的不仅是精神和神经系统疾病,还包括广泛的系统性疾病。
结论
总之,本研究通过开发准确的MRI模型,报告新的遗传因素,探讨潜在的蛋白质结构影响,识别可调整的生活方式和环境风险因素,并将其与多种疾病风险联系起来,有助于理解大脑衰老。这些发现为公共卫生干预措施的发展提供了有力证据,并为未来旨在减轻大脑加速衰老不良影响的研究提供了路线图。
数据和代码的可用性
主要数据已从英国生物样本库中删除,申请编号为91,486(发布日期:2024年1月8日)。功能注释数据公开于变体在线资源功能注释(FAVOR)网站103(https://favor. genohub.org)和FAVOR数据库104(https://doi.org/10. 7910/DVN/1VGTJI)。 3D DenseNet 以开源 Python 软件包的形式实现,可在 https://github.com/Project-MONAI 年获取。3D DenseNet 训练代码可在 https://github.com/lingxi211Code/UKBB_ BrainAging 找到。vcf2agds 作为一组小程序在英国生物样本库研究分析平台(RAP)中实现,https://github.com/drarwood/vcf2agds_overview 年可访问。vcf2agds 用于预处理英国生物样本库 WGS 数据。STAAR 以开源 R 包的形式实现,可于 https://github.com/xihaoli/STAAR 年获得。STAARpipeline 作为开源 R 包实现,https://github.com/xihaoli/STAARpipeline 年提供,英国生物样本库 RAP 中作为小程序,https:// github.com/xihaoli/staarpipeline-rap 年提供。STAARpipelineSummary 作为开源 R 软件包实现,https:// github.com/xihaoli/STAARpipelineSummary 可下载,并作为 UK Biobank RAP 中的小程序,可在 https://github.com/li-lab-genetics/ staarpipelinesummary_varset-rap 和 https://github.com/li-labgenetics/staarpipelinesummary_indvar-rap 获取。遗传数据分析在英国生物样本库RAP中进行。遗传数据分析中使用了STAAR v0.9.7、STAARpipeline v0.9.7和STAARpipelineSummary v0.9.7。GGIR 以开源 R 软件包的形式实现,https://github.com/wadpac/GGIR 年发布。CreateUKBphenome 以开源 R 包的形式实现,在https://github.com/umich-cphds/createUKBphenome.