作者,Evil Genius
今日我们分享文献,看来想发点好的文章,多组学是必然。
摘要
人类遗传多样性产生了惊人的面部形状多样性,而颅面畸形是最常见的出生缺陷之一。识别介导基因组影响面部变异的细胞机制仍然是一个挑战。研究构建了一个跨越胚胎第6-11周的多模态面部图谱,提供单细胞转录组学、染色质可及性和空间转录组学,全部在单细胞分辨率下。研究表征了56种细胞状态,在空间和时间上绘制了间充质亚型及其基因-增强子顺式调控景观。基因表达与面部特征的关联在早期间充质祖细胞中最强,逐渐变得更加区域限制。自相关分析揭示了定义间充质空间邻域的 patterning 基因,可能解释其附近变异的特征特异性。关键病理相关基因的增强子被发现可能是现代人类群体中产生面部变异的载体。其中一个与PAX1表达相关的增强子,似乎对小鼠正常骨骼发育很重要。最后,从GWAS推断的面部效应、细胞信号相互作用分析和小鼠验证揭示,外周神经在胚胎发育过程中微调上颌骨形状。总之,这些数据为人类表型个体性的机制提供了新见解,并产生了一个可用于研究颅面发育和异常的多模态图谱。
引言
- 人类物种展现出惊人的面部外观多样性,每一个都独特地 crafted 以在社会互动的剧场中发挥作用。面部变异的遗传基础通过亲属间的家族相似性和同卵双胞胎惊人相似的面孔显而易见。虽然全基因组关联研究(GWAS)揭示了面部多样性的遗传基础,但将遗传变异与特定面部形态联系起来的细胞过程仍然难以捉摸。
- 人脸主要来自颅神经嵴细胞(CNCCs)和中胚层祖细胞,它们通过保守的形态发生时间表产生软骨、骨骼、肌肉、脂肪组织、真皮、血管和神经支配。
- 在神经嵴迁移和分化为外胚间充质后,上皮信号中心(如额鼻外胚层区)和前脑诱导物种特异性模式的成骨凝结。成骨凝结产生软骨颅,有助于定义面部尺寸和下颌形状,其空间定位影响整体颅骨比例,包括短头和长头方面。后来,软骨颅直接骨化或作为真皮骨的模板。附近组织,如肌肉、脂肪组织和真皮,也可能影响面部骨骼形状,部分由于相互机械或旁分泌相互作用。然而,鉴于人类和模型生物之间的巨大差异,哪些细胞状态代表成人面部变异的主要驱动因素仍不清楚。
- 研究分析了发育中人类面部的基因、增强子和细胞类型的时空活动。使用单细胞多组学和空间转录组分析,表征了外胚间充质衍生物的转录多样化,绘制了其位置并识别了可能的分子调控因子。
- 发现颅面细胞类型对人类形态变异的影响随时间减弱,在外胚间充质发育的最早阶段影响最强。与GWAS分析和小鼠模型验证的整合揭示,外周神经调节哺乳动物上颌骨的 shaping。
- 使用空间自相关分析,识别了似乎有助于跨面部区域间充质细胞状态转录 patterning 的关键基因。虽然这些 patterning 基因似乎与面部疾病高度相关,与表观基因组数据重叠表明,patterning 基因专用增强子内的遗传变异驱动面部 shaping 的个体性。
- 此外,许多识别的候选增强子似乎是时空调控的和细胞类型特异性的。靶向删除一个这样的识别增强子序列,与人类外胚间充质祖细胞和真皮间充质中PAX1表达相关,导致小鼠骨骼缺陷。
人类颅面发育的综合单细胞图谱
-
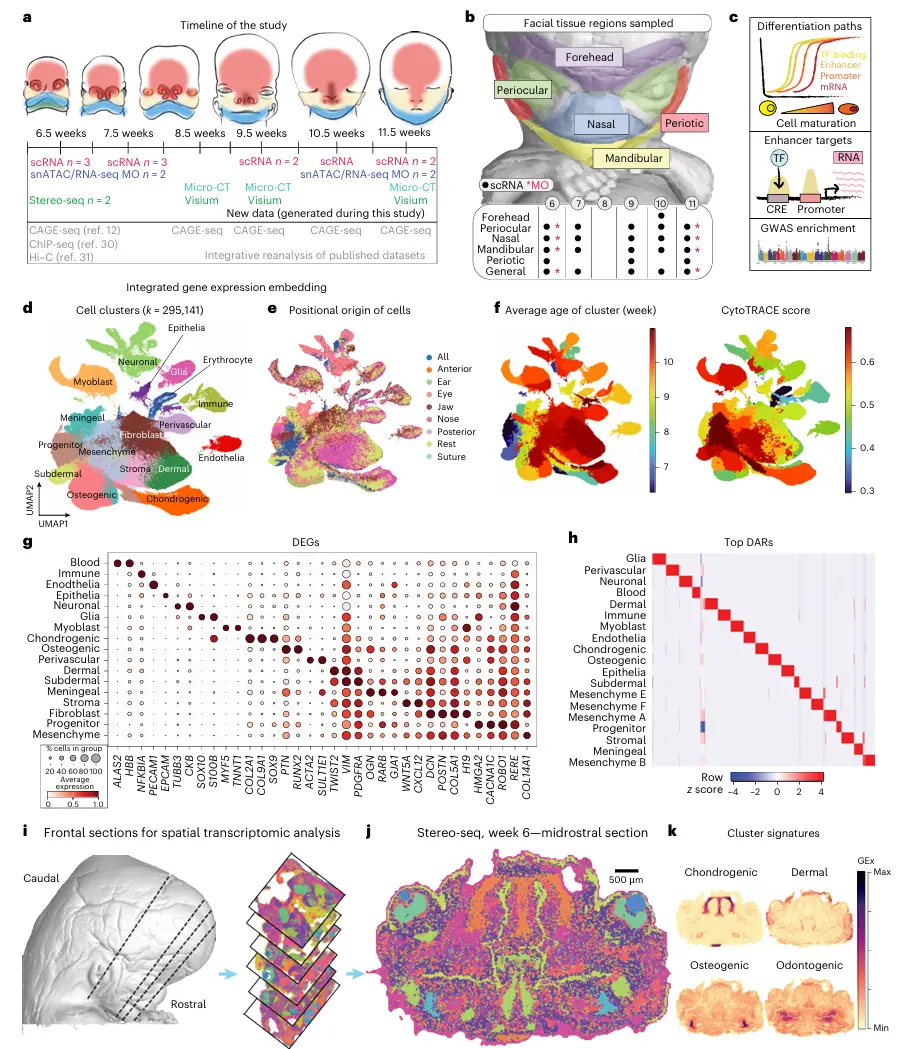
研究调查了跨越人类发育关键时期(从第6到第12孕周或6-12 PCW)的发育时间序列,使用一系列方法,包括单细胞RNA测序(scRNA-seq)转录组学、空间转录组学和微型计算机断层扫描(micro-CT)。
-
为了将基因表达与染色质调控联系起来,进行了单核RNA(snRNA)/ATAC-seq的基因表达和染色质可及性的配对测量,并进一步与已发表的表观基因组数据集重叠。
-
样本在立体显微镜下解剖为亚区域并分别处理用于scRNA-seq分析,所得数据集后来合并。
-
使用这些数据,旨在:(1) 研究候选顺式调控元件(称为"cCREs")的细胞类型特异性和时空活动,(2) 将推定的cCREs分配给基因靶标,(3) 通过将它们与GWAS变异重叠,将识别的cCREs与面部特征和先天畸形联系起来。
-
使用均匀流形近似投影(UMAP)可视化数据集中的细胞多样性、其位置起源和成熟阶段。
-
单核和单细胞数据集均主要捕获外胚间充质衍生物,如骨、软骨、周细胞、脑膜、真皮成纤维细胞和腱细胞,并检索了许多其他预期细胞类型。
-
使用差异表达标记基因,注释了17个粗粒度cluster和56个细粒度cluster,显示了大量差异可及区域(DARS)。
-
解剖区域在整合嵌入中不均匀代表,这可能反映组成效应和细胞类型内位置依赖表达。虽然一些细胞类型无论来源如何转录紧凑,大多数间充质显示来源依赖富集和祖细胞分化时的从左到右时间进展。
-
平均CytoTRACE评分与cluster年龄负相关,表明随时间失去多能性。
-
主要外胚间充质衍生物包括软骨、骨、血管周围细胞、脑膜和真皮(腱细胞和牙齿cluster未与间充质超级cluster分离)。软骨细胞首先出现,连同脑膜样细胞,而其他命运后来发展,与CNCCs早期参与软骨生成程序的报道一致。
-
探索 underlying 转录轨迹识别了软骨生成和肌生成的主要阶段,还识别了间充质细胞命运决定层级中的潜在位置效应。
人类胚胎面部组织中的空间编码
-
组织附近感觉器官的样本(n=3胚胎);然而,由于其相对较低的分辨率,将Visium结果视为确认性的,而主要依赖Stereo-seq数据以空间分辨方式识别细胞类型。
-
总之,这些数据跨越几个颅面区域,促进了推断可用于间充质细胞解剖感知分类的基因签名,以及识别细胞位置身份的潜在调控因子。
-
空间异质间充质产生各种细胞类型,但驱动胚胎人面部这种细胞 patterning 过程的因素尚不清楚。祖细胞中位置身份的建立通常依赖于跨不同细胞类型的转录因子(TF)表达的嵌套模式,限制在特定身体位置。
-
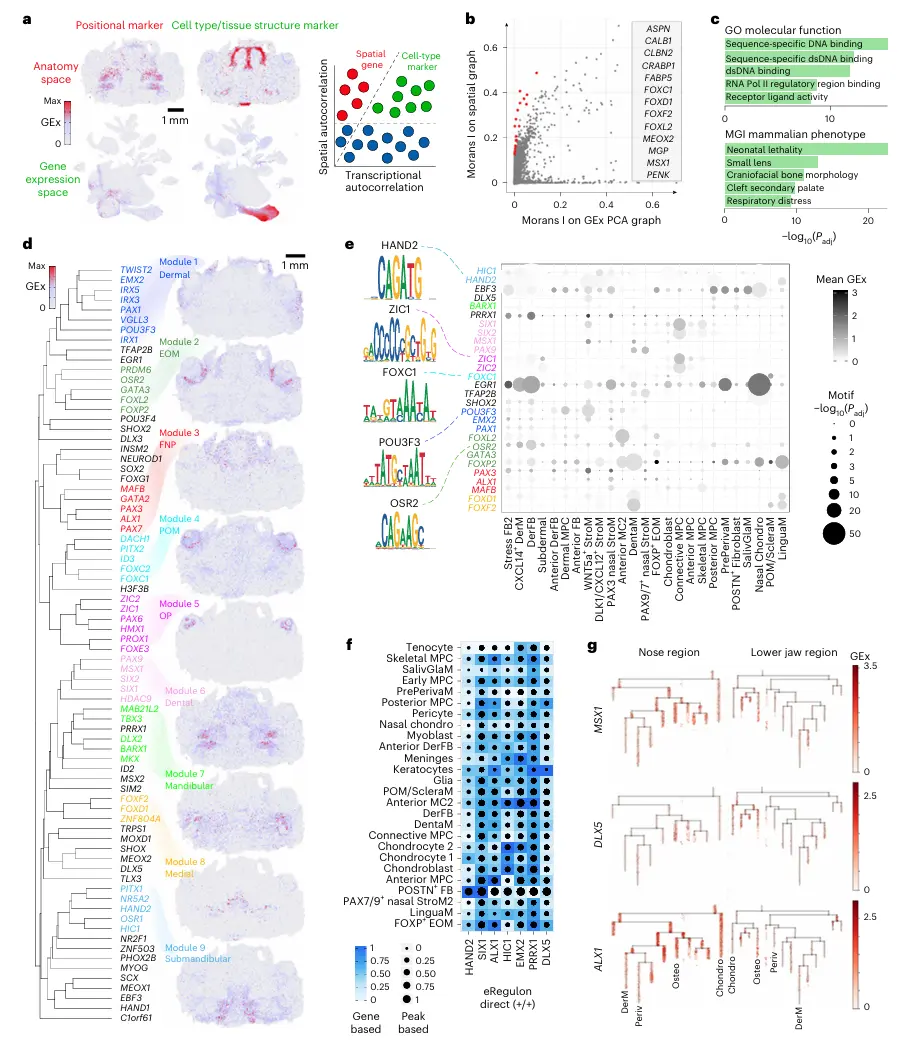
因此,为了发现与特定空间区域高度相关的基因(即空间编码),使用Moran's I度量检查基因在解剖空间以及基因表达空间(如主成分分析(PCA)空间或UMAP)中的自相关。
-
Moran's I度量询问邻近位置(细胞)是否可能对给定参数(基因表达)具有相似或不同的值。比较位置与转录自相关可以区分位置特异性但不细胞类型特异性的基因,这是空间编码(如Hox编码)的定义特征。
-
将该方法应用于Stereo-seq数据揭示396个所谓的"空间"基因。
-
通过Gene Ontology评估空间基因列表的分子功能,揭示TF活性是顶级功能注释,颅面疾病在顶级相关表型中富集。
-
基于降采样Stereo-seq bins中表达的层级聚类揭示九个相关TF模块,标记 distinct 面部域,即前真皮、形成眼睑、鼻区域、眼区域、晶状体、牙齿区域、下面部、舌表面和颌下区域。
-
空间TFs的结合位点在多种间充质细胞类型的DARs中显著富集,细胞类型特异性部分重叠每个模块。
-
使用SCENIC+的增强子驱动基因调控网络(eGRN)推断揭示空间TF网络、其候选增强子和下游靶基因在间充质cluster中的广泛活动。
-
此外,鼻和颌中间充质分化的轨迹分析显示空间TFs的表达,包括编码已知 patterning 调控因子的基因如ALX1和DLX5,是伪时间相关的,具有区域特异性表达谱。
-
因此,识别了在早期人面部各种空间区室中活跃的共表达TF组(模块)。数据表明,对于每个面部区域和相应的间充质细胞类型,不同的专用TF模块影响该区域内位点特异性和细胞类型特异性分化。
增强子筛选揭示影响面部生长的新基因组区域
-
通过增强子的基因表达时空调谐是假设的非编码变异影响面部形状的载体。试图识别在人类面部发育过程中与关键 patterning 基因相互作用的CREs(聚焦于增强子)。
-
虽然增强子语法和逻辑尚未完全阐明,但某些特征可用于找到它们。第一,增强子物理上与千碱基远的远端靶启动子关联(尽管已注意到例外,高达1.5 Mbps),由DNA环化或拓扑关联域(TADs)边界驱动。层级嵌套的亚TADs被认为促进进一步的短程增强子相互作用。第二,增强子通常显示加帽增强子RNA(eRNA)的双向转录,可通过基因表达加帽分析(CAGE)检测。第三,增强子显示组蛋白标记如组蛋白3上赖氨酸27乙酰化(H3K27ac)。最后,增强子的染色质可及性应与靶基因或上游伙伴的表达相关。
-
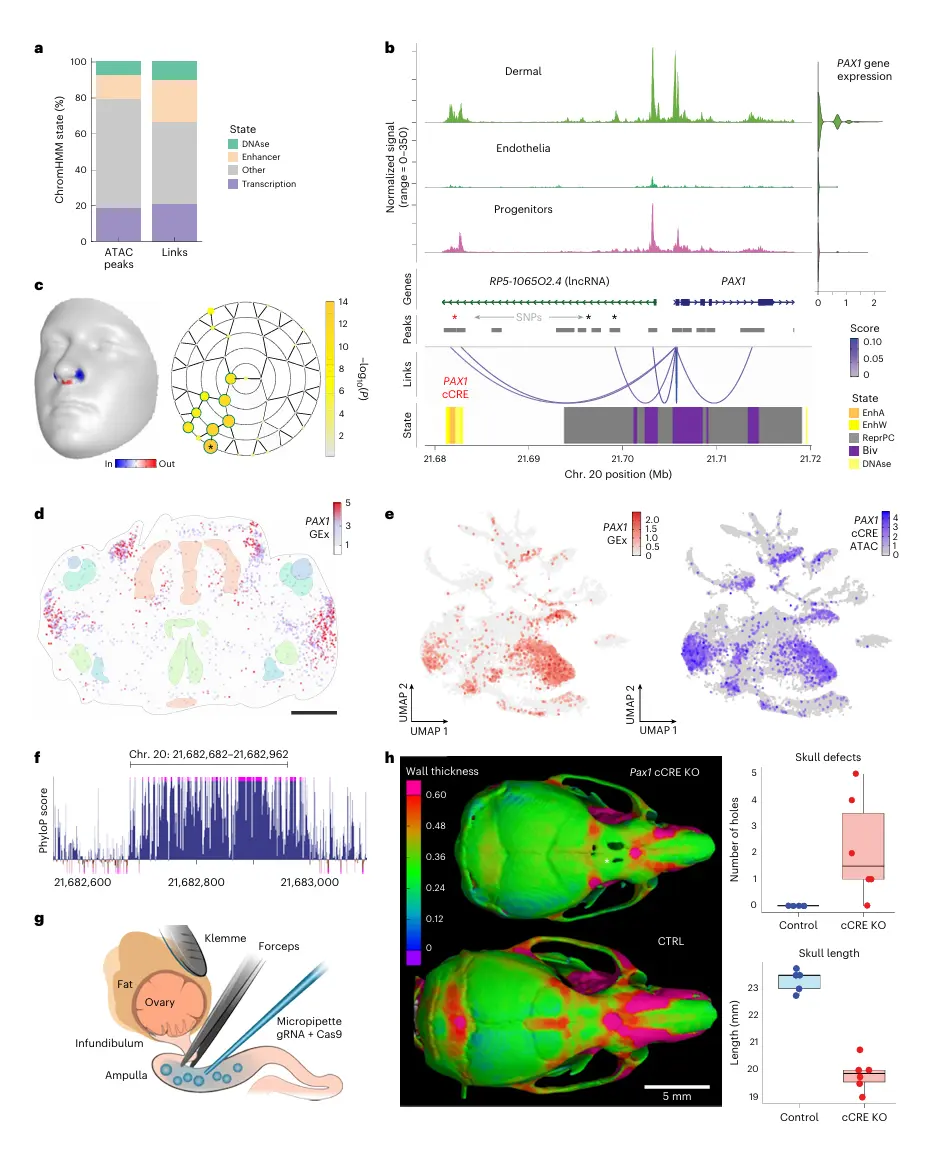
使用这些分子特征,探索了增强子(可能是空间基因的)驱动成人面部形状变异和/或新生儿病理的假设。为了将 promising cCREs 与靶基因联系起来,使用Signac包的LinkPeaks函数,其筛选开放染色质和基因表达之间的相关性(基因-峰对称为"links"),并将结果与已发表的面部增强子和GWAS数据集重叠,揭示大量预测的基因-增强子相互作用。
-
为了在体内验证cCRE重要性,进行了原理验证实验,靶向一个在小鼠中保守的峰,其与空间TF相关并包含先前GWAS识别的全基因组显著SNPs。该峰位于一个长非编码RNA内,大约20千碱基(kb)上游其相关基因PAX1,该基因负责耳面颈综合征OTFCS2。PAX1在面部间充质、生骨节和咽囊中表达。PAX1敲除(KO)小鼠据报道发展出特征性的长鼻(among other symptoms),OTFCS2患者具有症状组合和面部畸形,包括窄鼻梁。PAX1-cCRE带有增强子标记和与鼻宽度相关的变异。PAX1在一般scRNA-seq嵌入中的早期间充质祖细胞和真皮间充质中观察到,并在Stereo-seq分析中特异性发现于前真皮域,特别是邻近形成鼻软骨的前真皮细胞。类似地,PAX1-cCRE显示细胞类型特异性可及性在祖细胞和分化真皮中。
-
因为小鼠谱系追踪研究表明神经嵴细胞在骨骼和真皮组织中具有双潜能,并且鉴于PAX1已知与软骨主调控因子SOX9进行转录竞争,PAX1表达域的顺式调控影响被假设影响额鼻结构的发育。
-
识别了PAX1-cCRE内一个276 bp区域,在小鼠和人类之间94%保守,并在其他脊椎动物中高度保守。利用iGONAD系统使用CRISPR编辑删除该保守区域。杂交PAX1-cCRE编辑小鼠一致产生含有较小身体、较短头部和明显颅骨缺陷的小鼠的窝。有趣的是,这些小鼠缺乏PAX1 KO小鼠的一些特征,如脊柱侧弯或扭结尾。这些结果提供证据表明靶向保守增强子区域与基因PAX1共激活,并对哺乳动物骨骼形态重要,但进一步研究应确定该序列是否直接与PAX1相互作用,因为仅LinkPeaks分析不能有效区分这种可能性。
通过GWAS特征将胚胎面部细胞类型与面部特征关联
-
在人类以及其他脊椎动物如小鼠中,肌肉骨骼组织形状通常早期建立并在发育过程中忠实地缩放,如micro-CT扫描所示,但细胞状态如何影响特定特征仍不清楚。
-
为了理解每种细胞类型在胚胎发生过程中对面部 shaping 自然变异的贡献,将数据集与大型面部GWAS重叠,该GWAS最近识别了数千个与>60个 distinct 面部特征相关的高度显著变异,按大小排序。
-
目标是将SNPs与特定细胞群体联系起来,使用以下理由:(1) 大多数SNPs位于编码区之外;因此,其影响的常见解释是变异影响增强子活性。(2) 基于增强子的基因激活发生在嵌套TADs内,导致基因组距离与调控相互作用可能性之间的反向关系。
-
为实现这一点,通过聚合高度显著特征相关变异附近的基因表达,为每种细胞类型计算特征富集的距离加权度量。
-
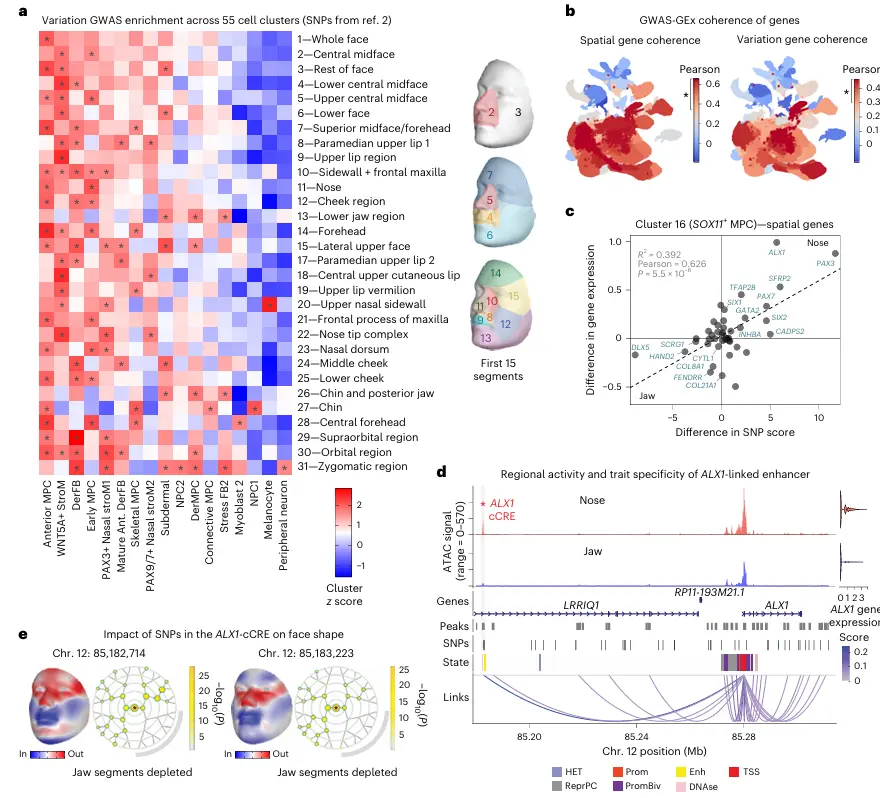
间充质祖细胞类型显著富集较大的全局(top 19)特征,与所有其他细胞类型相比,与 shaping 中的基础作用一致。相对次要或局部特征在更成熟细胞中富集,表明细胞对面部特征的影响随时间减弱。这可部分解释为间充质凝结和软骨的初始形状为早期软骨内和膜内骨沉积提供了模板,从而影响骨形态,即使在软骨颅消退后很长时间。
-
注意到最高排名的间充质群体,来自额鼻和上颌突,优先富集前部特征如上脸部。因为人类胚胎中基因表达的模式预期影响成人面部的形状,测试了表达定位是否可以解释其基因组近端变异的特征特异性。
-
通过对比所有SNPs的显著性和附近基因的表达计算鼻-颌评分。虽然考虑所有基因时只发现弱到无相关性,但仅考虑396个"空间"基因时,几乎所有细胞类型显示特征表达和特征特异性之间的强正相关,以及考虑与携带面部变异SNPs的峰相关的基因时。
-
这种相关性由编码具有已知 patterning 作用的空间TFs的基因部分驱动,如ALX1,其限于上脸部区域。ALX1,负责常染色体隐性额鼻发育不良的基因,标记上中面部空间域,并位于具有强上脸部特异性的基因组变异附近,提示功能联系。
-
确实,观察到一个ALX1相关cCRE 80 kbp上游(位于基因LRRIQ1的内含子中)显示鼻特异性可及性和推定增强子活性,带有上脸部变异。
-
通常,区域特异性DARs被发现与超过100个识别的空间基因相关。基因集富集分析和1000 Genomes项目的探索揭示驱动变异和先天疾病的基因之间的显著重叠,并表明靶向关键发育基因的增强子中的变异可能是人类面部多样性产生的热点。
-
总之,这些发现揭示了涉及特定祖细胞群体中增强子局部激活的变异特征特异性的潜在基础。
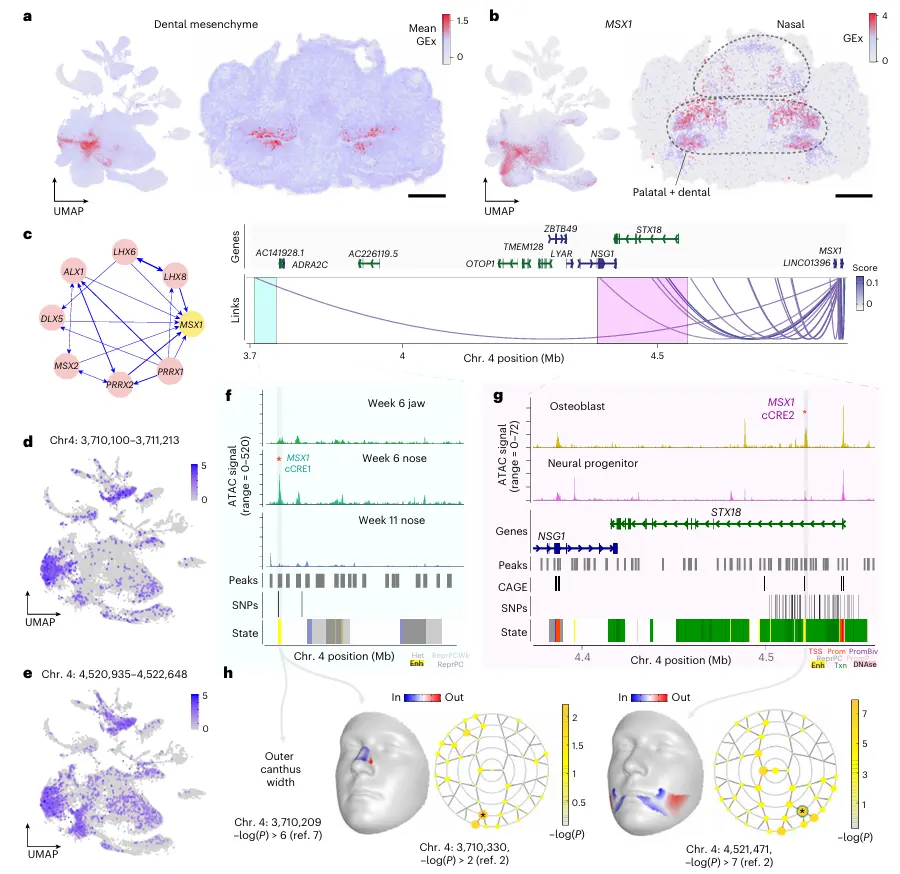
与MSX1基因相关的差异活跃增强子相关的不同面部特征
-
基因表达模式被认为通过具有 distinct 激活谱的多个增强子的活动复合出现,这得到LinkPeaks分析的支持。
-
发现了一个显著的例子,对于MSX1,该基因与面部异常如少牙、腭裂和Witkop(牙和指甲)综合征相关,有时在Wolf-Hirschhorn综合征(WHS)患者中缺失,由chr. 4短臂的部分缺失引起。WHS颅面严重程度与缺失大小相关,即使在MSX1基因未受干扰的患者中。
-
MSX1标记牙齿间充质细胞cluster和前牙空间域,与其作为牙齿发育重要因子的作用一致。然而,也观察到MSX1在上中面部和鼻区域的表达。确实,MSX1表达与其他面部软骨相比高度特异性于鼻软骨。
-
为了研究MSX1的基因调控,咨询了SCENIC结果,其表明前部和后部面部 patterning 因子位于MSX1 GRN上游,可能代表区域特异性调控相互作用的混合物。
-
参考cCREs列表,观察到多个MSX1相关cCREs在祖细胞中可及,显示推定增强子活性和携带特征特异性变异,与跨区域和细胞类型的可及性差异一致。这个例子说明跨不同面部区域的多个增强子如何复合建立发育过程中重要的基因表达域,对面部 shaping 和潜在病理如WHS有后果。
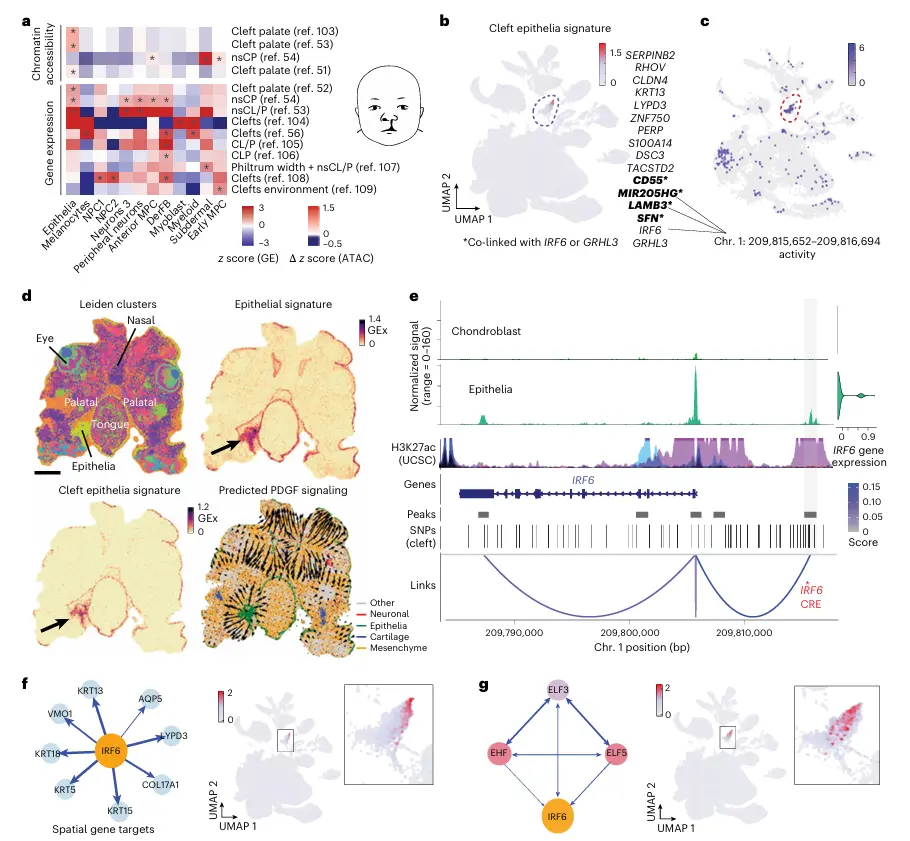
裂口相关上皮基因表达签名揭示多效性增强子-基因链接
-
想知道 underlying 颅面病理的变异是否也会在间充质祖细胞类型中最强富集,但在检查聚焦于口面裂的GWAS数据集时并非如此,因为上皮细胞在多个研究中通过表达和可及性是最裂口富集的。
-
在数据集中发现一个上皮细胞群体表达已知腭裂相关基因IRF6和GRHL3,它们在腭发生过程中及时periderm分化和清除必需的基因回路中共同作用。
-
识别了一个基因签名标记这个裂口相关上皮亚群,以及一个与这个签名内多个基因相关的cCRE------IRF6、MIR205HG和LAMB3。
-
裂口-上皮签名被发现表达在形成腭上方的上皮和唾液腺上皮中,在PCW6(periderm形成开始时)。这个基因签名部分共定位于基于COMMOT分析的血小板衍生生长因子(PDGF)信号通路的预测中心。PDGF信号是小鼠唾液腺形态发生和腭发生所需的,可能广泛部署在颅面上皮生态位中。
-
IRF6-cCRE,其与增强子标记和腭裂相关SNPs重叠,先前已被描述为IRF6增强子,但据我们所知尚未与LAMB3或MIR205HG相关。这个多效性cCRE的可及性对上皮细胞特异性。
-
最后,SCENIC+分析重建了部分IRF6 GRN,识别了许多潜在靶标包括LAMB3,以及几个空间基因(包括基底和periderm角蛋白;这些空间基因靶标显示在Fig. 6f中)和一组有限的上游调控因子包括编码ELF5、ELF3和EHF的基因。这分析了人类发育过程中裂口相关上皮标记物潜在调控的一瞥,作为一个例子,生成的数据集可用于发现 underlying 面部病理的新靶标和调控因子。
外周神经微调面部骨骼
-
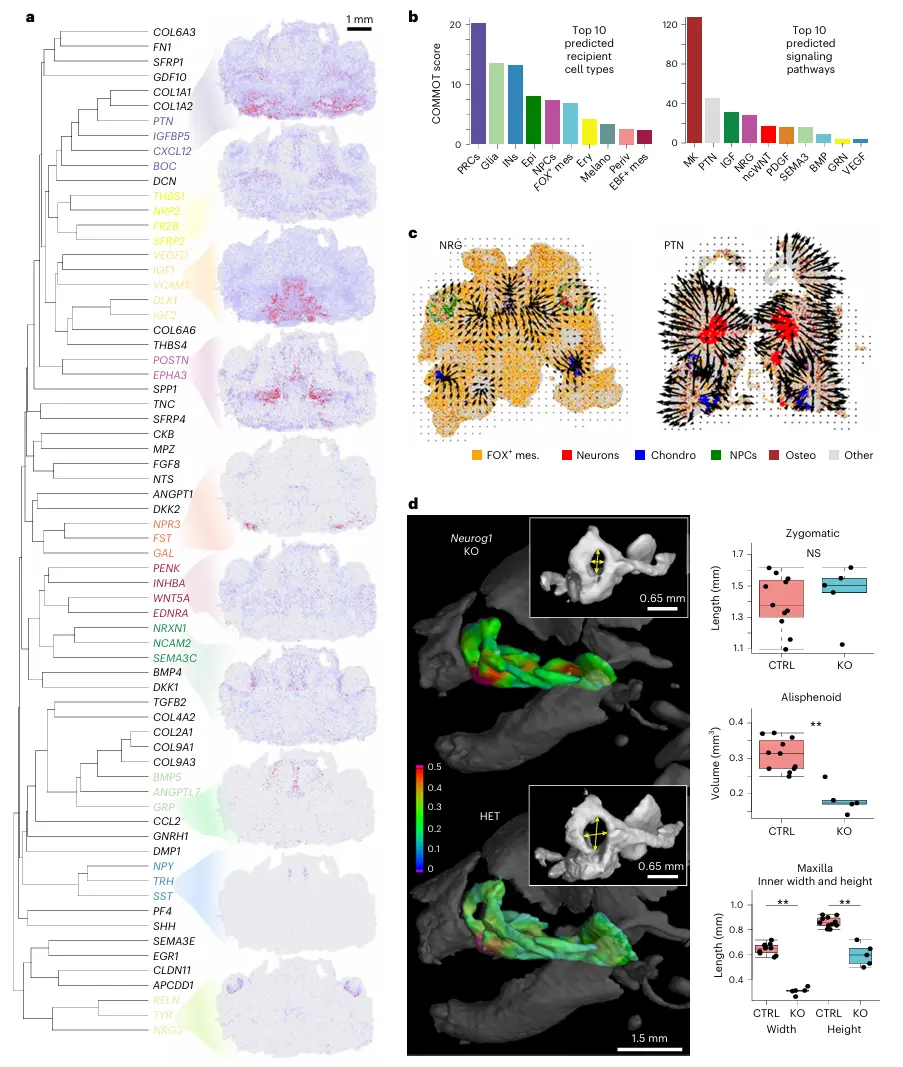
局部CRE和/或TF活动的面部域被认为部分由分泌信号分子建立。注意到受体-配体信号在空间基因的分子功能中排名很高,计算了共表达信号因子模块的域,结果与TF域相比显示相似的表达谱。
-
绘制空间基因细胞类型分布揭示几个识别的信号因子主要在外周神经元中表达。基于外周神经元在颧骨形状变异和腭裂中的特征富集,对外周神经元在面部生长中的作用感到好奇。
-
使用COMMOT研究发育中人类面部的信号景观。如预期,非经典Wnt信号、内皮素、胰岛素生长因子、PDGF和其他已建立的颅面相关通路在PCW6显示高水平激活,COMMOT分析预测已知靶基因关联,如内皮素信号激活DLX5。
-
然后聚焦于神经元是预测发送者的通路,并识别可能是神经元分泌信号接收者的细胞类型。该分析预测Neuregulin和Pleiotrophin信号相互作用发生在外周神经元和多个间充质亚型之间。
-
传入Pleiotrophin信号与许多空间基因的激活相关,以及重要的促骨骼标记如RUNX2和ZFHX3。
-
为了探索外周神经元在微调面部骨骼中的潜在作用,分析了由于Neurogenin 1(Neurog1)遗传KO而缺乏颅感觉神经节的小鼠胚胎的颅面形态,并发现特定的面部异常。虽然没有观察到颧骨长度的差异,但发现上颌骨和翼蝶骨形状的显著和清晰差异,表明外周神经元影响哺乳动物胚胎中的颅面骨骼 shaping。进一步努力应旨在确定Neurog1-KO骨骼的缺陷是由改变的细胞信号还是其他机制引起的。
讨论
- 哪些细胞类型对面部多样性贡献最大?虽然出生后生长对一个人一生中面部外观的变化贡献最大,但产前发育通过遗传和环境因素的混合驱动面部间的变异(例如饮食)。
- 与先前在模型生物中的胚胎学工作以及先前在人类中的表观基因组测量一致,特征富集发现指向早期外胚间充质祖细胞作为 shaping 广泛面部尺寸的变异的主要底物,而更局部的特征在逐渐分化的细胞中富集,包括外周神经元与上颌面部方面之间的意外关联。
- 如预期,SNPs的影响与间充质细胞中"空间"基因表达模式强相关,表明成人面部特征变异的遗传关联可以部分解释为对外胚间充质细胞 patterning 的影响。
- 在可视化这个基因列表内信号分子和TFs之间的共表达时,观察到区域域部分对应于从模型生物已知的内容。识别的域是否代表在其相互边界积极竞争细胞空间的基因模块,还是指示更早 patterning 决定的结果,将是有趣的追求。
- 虽然人脸与小鼠和其他模型生物有实质性差异,并且可能依赖于关键的人类特异性调控元件,但软骨颅发育的人类特异性方面仍然相对未被充分研究。在这项工作中,为了识别人类非编码调控元件的基因靶标,组装了一个区域分辨和细胞类型分辨的50,000个cCREs图谱,其峰可及性反映基因表达(即links)。
- 建立在先前出版物基础上,显示许多这些新links与显示基于环的增强子逻辑的基因组区域重叠,以及大量eRNAs和验证的颅面增强子,共同表明LinkPeaks方法富集了在人类面部组织中活跃的真正发育增强子。
- 总体而言,这些数据支持大量进化保守和一些人类特异性增强子相互作用。跟随这一结果,进行大规模多重活性测定实验以定义增强子功能的时空窗口,应有助于加速解决识别增强子病的问题,这是一个仍在增长的疾病类别。
Methods(方法)
Visium and Stereo-seq sample preparation and data analysis(Visium和Stereo-seq样本制备和数据分析)
- Visium读取使用Space Ranger(10x Genomics)处理。为了考虑dropouts,对数据集去噪。去噪和原始计数然后使用Scanpy管道处理。去噪计数表仅用于计算邻域图和聚类Visium斑点。GWAS富集评分在归一化原始计数上计算。
- 使用Tangram计算细胞类型评分,使用对应于切片的参考scRNA-seq,尽可能来自同一样本。
- 对于Stereo-seq分析,读取映射、计数和细胞分割使用SAW管道进行。之后使用Stereopy(v0.12.1)转换为h5ad。Stereo-seq数据的注释使用CellTypist(v1.6.3)从scRNA-seq数据进行标签转移。
- 所有空间数据集中细胞信号通讯的推断使用COMMOT进行。为了分析靶基因,从COMMOT结果中检索通路的顶级全局基因激活。COMMOT使用tradeSeq的associationTest()输出响应通路的显著差异表达基因。它还拟合每个通路的平滑曲线,并用此过滤与基因表达的正相关以检索基因激活。对于每个样本,选择top 50基因-通路激活。对通路激活评分有贡献的基因(例如受体)被去除。在这些基因中,跨所有样本,为每个通路-基因对选择最大强度的关联评分。
Spatial codes analysis(空间编码分析)
- 对于细胞和bin嵌入创建,使用Scanpy进行log1p转化后接PCA。在来自Stereo-seq数据的细胞嵌入情况下,第一PC从进一步分析中排除,因为它仅捕获细胞测序深度的差异。基于嵌入构建K-最近邻图,并进一步用于Leiden算法聚类。
- 空间限制和cluster非限制细胞被检测为空间图Moran's I和基因表达图Moran's I之间的权衡。更准确地说,Squidpy(v1.2.2)用于计算空间和基因表达图上的Moran's I。
- 每个组织切片,选择空间Moran's I和平方根基因表达Moran's I之间差异最大的top 100基因作为潜在感兴趣基因。这导致从至少一个切片保存396个独特空间基因(Supplementary Table 3显示平均评分)和跨两个胚胎保存134个独特基因。对于下游分析,继续使用396个基因。
- 这些基因通过已知分子功能 curated 为列表,如转录调控因子或分泌信号或细胞外基质因子。
- 为了评估共表达谱,Stereo-seq切片降采样为约400个bins(bin大小=500),并基于每个bin的表达计算基因对之间的Pearson相关性。
- 基于相关距离矩阵的层级凝聚聚类使用平均连接(UPGMA),随后通过使用'cutree'包(k=25)切割树状图分配模块,根据表达谱相似性添加或排除一些相邻基因。共识树使用所有空间基因和所有Stereo-seq切片构建,但空间TF和信号模块使用中吻侧切片分析,因为它显示最多感兴趣区域和高于中位数的与共识树的一致性。