作者,Evil Genius
国庆期间,大家可以好好休息一下,放松心情再出发,或许现在正在经历一些不好的事情,但一定都会过去。
今天我们分享文献,多组学的研究,这也是必然的趋势与选择。
摘要
表观遗传衰老是慢性疾病的标志。虽然这种表观遗传变化可以在组织损伤后出现,但受影响的细胞类型在很大程度上仍不清楚。本研究构建了来自健康、损伤(人类)和衰老(小鼠)肾脏的DNA甲基化、染色质可及性和转录谱的跨物种单细胞多组学图谱。研究发现,患病肾脏中的肾小管上皮细胞表现出显著的加速表观遗传衰老,并表明这种病理状态反映了衰老过程中观察到的转录轨迹,由缺乏CpG岛的谱系特异性基因的优先失调驱动。在空间上,这些表观遗传变化映射到未解决修复的病理生态位。单细胞DNA甲基化和3D基因组架构的联合分析揭示,疾病中的上皮修复状态经历显著的高阶基因组重组,同时伴随与肾功能下降相关的基因激活。总之,研究结果表征了协调的三维染色质结构内表观遗传抑制的丧失和局部甲基化组完整性的降低,这在衰老过程中损害上皮细胞身份并阻碍修复。
引言
慢性疾病的挑战
- 慢性疾病,如慢性肾脏病(CKD),代表了重大的公共卫生挑战,给全球患者和医疗系统带来了巨大负担。
- CKD通常源于长期损伤和炎症导致的肾功能进行性下降,导致肾单位细胞类型的功能修复受损。
- 一些受损细胞不是消退,而是采用持续的功能障碍状态,导致纤维化和器官衰竭。
表观遗传机制的作用
- 表观遗传机制对于建立和维持细胞身份以及调节细胞对应激的反应至关重要。
- 虽然这些机制通常指导成功的修复,但表观遗传失调可以将组织从适应性修复转变为持续的病理状态。
- 然而,由于肾脏中存在多种细胞类型,与慢性疾病中这种修复失败相关的细胞类型特异性表观遗传程序尚未被很好地理解。
研究挑战
- 由于肾脏的复杂细胞异质性,剖析这些肾脏疾病发病机制一直具有挑战性。
- 虽然最近的单细胞研究提供了对转录组和染色质可及性的见解,但支配细胞身份的更深层表观遗传层的细胞类型分辨视图仍然缺失。
- 具体而言,DNA甲基化提供了细胞状态的稳定、长期记录,而三维(3D)基因组架构支配基因调控所需的物理拓扑。捕获这些层对于理解慢性条件下调控回路如何被重连至关重要。
- 此外,虽然衰老已知是CKD的主要风险因素,但正常年龄相关表观遗传漂移与驱动疾病病理的特定改变之间的相互作用仍有待阐明。
研究目标
- 为了解决这些差距,研究团队构建了一个跨物种、多模态的单细胞肾脏表观基因组图谱,涵盖健康和患病的人类肾脏以及年轻和衰老的小鼠肾脏。
- 这个跨物种数据集使研究团队能够检查与年龄和疾病相关的保守和 divergent 甲基化特征。
- 通过生成单细胞DNA甲基化组以及匹配的单细胞RNA和染色质可及性谱,识别出细胞类型特异性的表观遗传变化,并发现疾病相关的DNA甲基化时钟年龄加速在肾小管上皮中最为显著。
- 图谱独特地将这些模态与空间转录组学(Xenium)和单细胞甲基-Hi-C(scMethyl-Hi-C)整合,以将这些变化映射到特定组织生态位,并揭示潜在的高阶染色质重组。
结果部分 1:人类和小鼠肾脏的多模态表观基因组图谱
数据生成
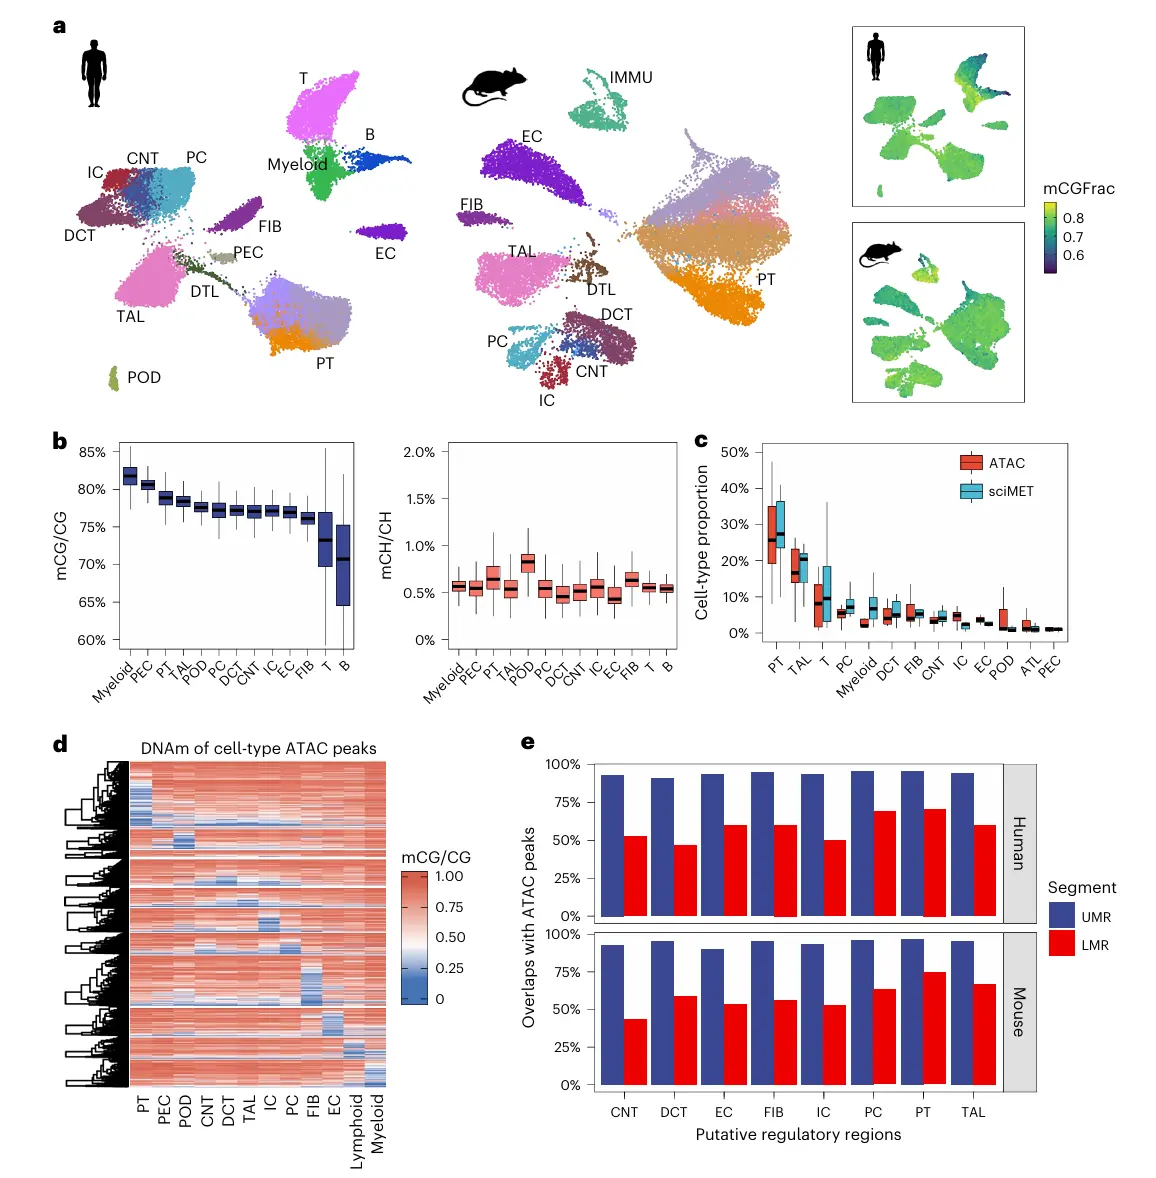
- 应用细胞组合索引方法(sciMET)生成跨物种单细胞DNA甲基化图谱,包含57,619个高质量细胞核。
- 该数据集涵盖12名人类供体(33,835个细胞核,来自7名肾脏疾病患者和5个年龄匹配的参考组织)和6只小鼠(23,784个细胞核,来自3只年轻和3只衰老动物),每个细胞中位数0.91百万个CpG位点(约人类基因组3.1%的CpG覆盖)。
- 为了最小化技术变异,人类样本在一个批次中合并处理,并基于SNPs去卷积。来自全基因组DNA测序的供体特异性变异验证了多重化准确性,99.2%的sciMET细胞核被分配到正确的供体来源。
多模态整合
- 为了将这些表观遗传谱与基因调控、组织生态位和染色质架构联系起来,将单细胞DNA甲基化图谱与匹配的多模态数据集整合。
- 生成匹配的人类(142,459个细胞核,来自9个样本)和小鼠样本(36,563个细胞核,来自6个样本)的单细胞多组学,以直接将DNA甲基化与染色质可及性和基因表达联系起来。
- 通过使用Xenium为代表性的健康、急性肾损伤(AKI)和CKD样本生成空间转录组图谱(383,771个细胞,来自4个样本),进一步将这些发现置于背景中,并使用scMethyl-Hi-C在健康参考供体上定义基线3D染色质区室。
细胞类型鉴定
- 首先试图基于其独特的表观遗传谱准确识别和注释肾脏细胞类型。
- 人类单细胞甲基化组的无监督聚类成功识别出所有已知的主要肾脏细胞类型。
- 基于经典标记基因的启动子低甲基化注释这些cluster,如PODXL用于足细胞(POD)和SLC34A1用于近端小管(PT)细胞。
- 直系同源基因的评估确保了小鼠肾脏中匹配细胞类型的一致识别。
- 全局DNA甲基化水平在很大程度上是稳定的,大多数谱系中范围为69.1%至81.7%,除了免疫细胞,其表现出更大的CpG甲基化异质性,与其多样功能状态一致。
- 聚合单细胞谱产生bulk 细胞类型甲基化组,范围从28.35到2920万个CpG,确保调控元素的稳健检测。
- 对照参考bulk甲基化组的验证确认了细胞类型分配的高准确性,而单细胞方法能够高分辨率区分肾小管上皮内的亚群。
染色质可及性与DNA甲基化的关系
-
使用匹配的单细胞多组学数据研究细胞类型特异性调控元素处染色质可及性与DNA甲基化之间的关系。
-
虽然两种模态的细胞组成显示强一致性(Spearman's rho = 0.72),但sciMET检测到更高比例的免疫细胞,特别是髓系谱系。这种差异可能归因于单核RNA测序(snRNA-seq)低估免疫群体,其可能具有较低的核RNA含量。
-
正如预期,细胞类型特异性ATAC峰在其相应细胞类型中显示清晰的低甲基化。
-
为了进一步表征调控元素,基于甲基化模式分割基因组,识别未甲基化区域(UMRs;<10%甲基化,CpG丰富)和低甲基化区域(LMRs;10-50%甲基化,CpG贫乏)。这些区域已知分别是启动子和增强子的特征。
-
大多数UMRs(92.6%)与ATAC峰重叠,这与开放和活跃启动子的性质一致。相比之下,较小比例的LMRs(54.8%)与ATAC峰重叠,表明远端调控元素内甲基化与可及性之间关系的更大变异性。
-
总之,这种多模态整合突出了启动子处染色质可及性与DNA甲基化之间的一致性,同时捕获其在远端调控元素处的 distinct 模式,建立了表征肾脏表观基因组的高分辨率严格框架。
结果部分 2:肾脏细胞类型中的表观遗传保守与分歧
跨物种比较
- 为了研究缺乏进化约束的基因组区域是否不成比例地易受年龄相关失调的影响,联合分析人类和小鼠单细胞甲基化组以量化进化保守性。
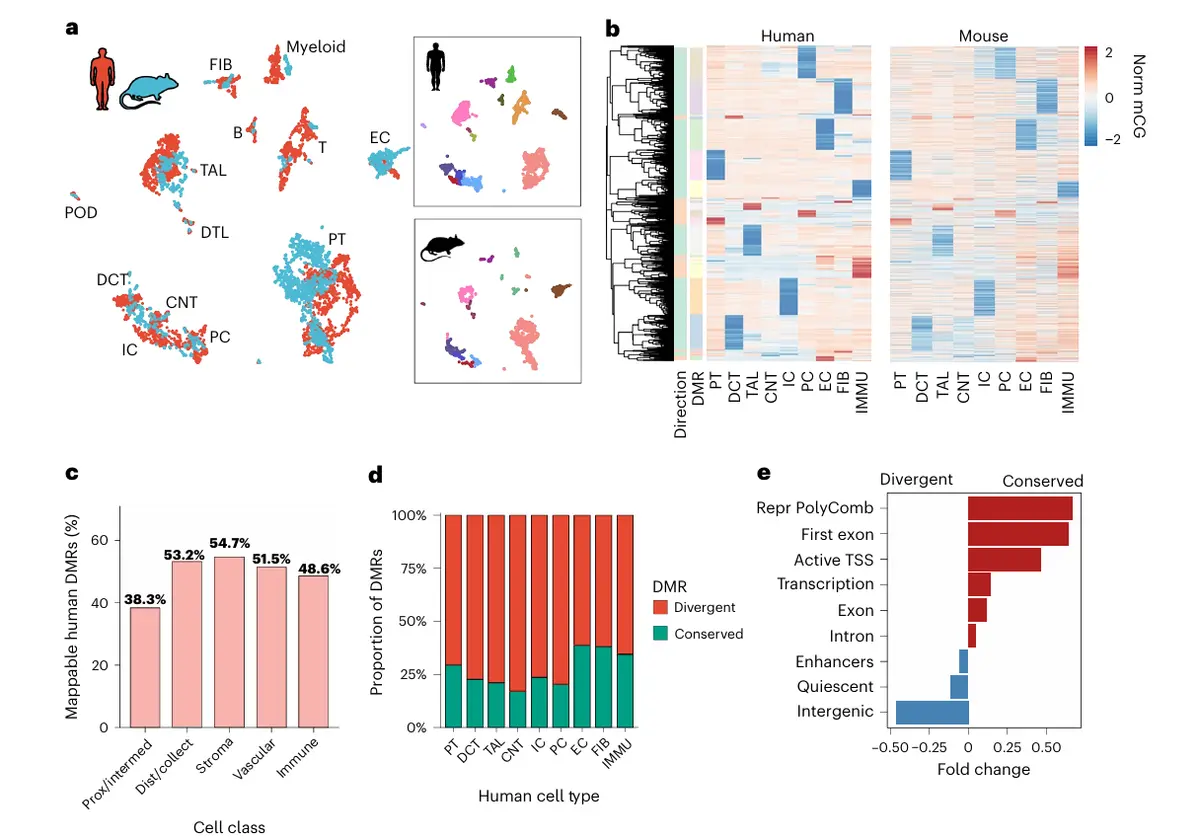
- 为了解决稀疏测量,将每个细胞与其50个最近邻居聚合成元细胞。然后在40,284个一对一 orthologous 5-kbp bins中分析这些元细胞,并使用Harmony整合所得数据集。
- 批次校正后,人类和小鼠细胞核按细胞类型共聚类。经典标记基因处的甲基化模式在同源细胞类型中一致。
- 整合空间中的Leiden聚类识别出13个共识肾脏谱系。这是使用2,180个物种间共享的保守高甲基化或低甲基化区域的参考面板实现的。
- 总体而言,细胞类型组成在物种间 largely 相似,丰度差异可能由于差异采样。
差异甲基化分析
- 跨人类肾脏细胞类型的差异甲基化分析揭示208,049个细胞类型特异性差异甲基化区域(DMRs)。
- 全甲基化组测序虽然在每个细胞稀疏,但证明是有利的,因为这些人类DMRs中只有16.4%与Illumina 850K阵列上的CpGs重叠,表明先前基于甲基化阵列的研究错过了基因组中更大比例的调控元素。
- 在人类细胞类型DMRs中,138,110个区域可映射到小鼠基因组,其中57,259个对齐到物种间的一对一 orthologous 位点。
- 在这些 orthologous DMRs中观察到细胞类型特异性甲基化状态的显著保守性,34%的人类DMRs在小鼠中保持相同状态;然而,与非上皮群体相比,上皮细胞类型显示出显著更大的种间甲基化分歧。
- 这种分歧与较低的 underlying 序列保守性相关,特别是在近端和中间小管上皮细胞的DMRs中观察到。
- 这一观察与先前的跨物种研究一致,显示上皮群体与神经、肌肉和免疫谱系相比具有更大的物种特异性分歧,可能反映上皮远端调控元素更快的表观遗传进化。
进化模式
- 分析物种间差异甲基化揭示 distinct 进化模式。
- 保守细胞类型DMRs富集在转录起始位点和Polycomb抑制染色质状态,表明替代谱系程序的主动沉默是跨物种维持肾脏细胞身份的进化保守机制。
- 相比之下,物种特异性DMRs主要位于远端、低甲基化增强子和基因间区域。
PT细胞中的TF基序
- 在PT细胞中,保守和非保守DMRs均显示HNF4A和PPARA转录因子(TF)结合基序的富集,突出其在哺乳动物PT身份中的一致作用;然而,AP-1和MYC家族TF基序仅在物种分歧PT DMRs中富集,表明应激反应、增殖和代谢途径调控的物种特异性差异。
- 使用GREAT的功能注释将保守PT DMRs与核心肾单位功能如"有机阴离子转运"、"尿酸盐转运"和"细胞氨基酸代谢过程"联系起来。
- 相反,分歧PT DMRs富集与衰老和细胞衰老密切相关的基因组维持和稳定性过程,包括"端粒DNA结合的负调控"、"组蛋白H2A K63连接泛素化的负调控"和"蛋白质修复"。它们还显示与更广泛发育模式相关的术语富集,包括神经发育,表明肾脏中较弱的进化约束或其他组织中的上下文特异性作用。
小结
-
总之,这些发现表明进化稳定的差异甲基化支配核心肾脏生理,而增强子元素中的分歧富集染色质维持和应激反应通路。这些特征可能贡献于人类上皮细胞对年龄相关表观遗传漂移和疾病相关重塑的易感性增加。
结果部分 3:年龄与小鼠肾脏中细胞类型特异性表观遗传重塑相关
衰老特征
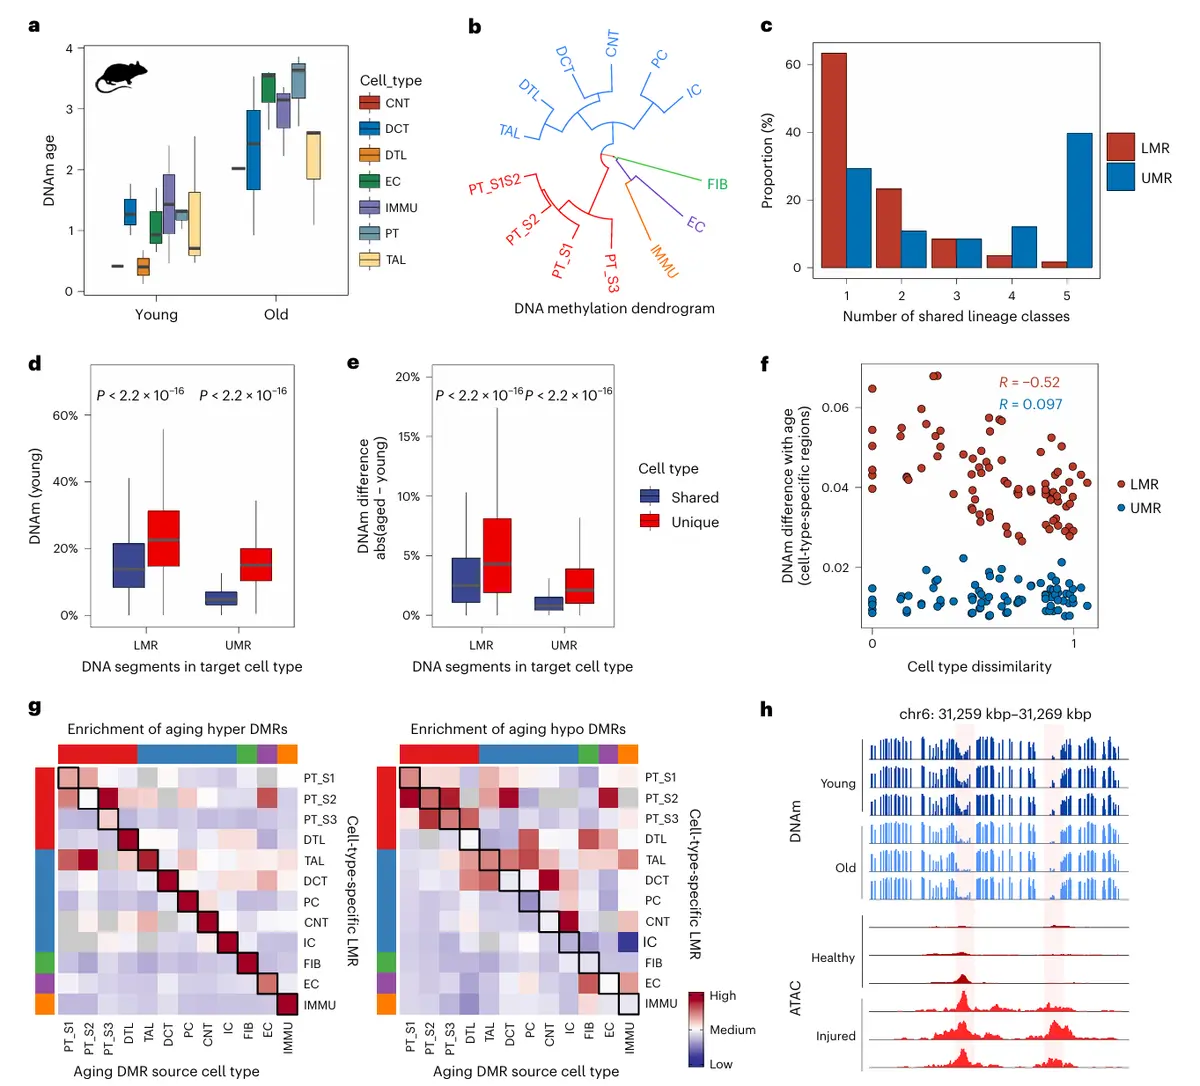
- 对小鼠肾脏甲基化组的分析捕获了强衰老特征,因为基于全局DNA甲基化的表观遗传时钟准确区分年轻(4个月)和衰老(20个月)小鼠。
- 首先表征推定的调控区域(UMRs和LMRs)跨细胞类型的甲基化模式。这揭示具有细胞类型特异性低甲基化的区域富集在LMRs中,而跨细胞类型共享的区域富集在UMRs中。
- 然后研究衰老是否选择性影响这些元素。确实,细胞类型特异性UMR/LMRs表现出显著更大的高甲基化和更显著的年龄相关甲基化转变,与其共享对应物相比。这表明维持特化细胞身份的调控元素本质上比支配核心、共享细胞功能的元素更容易受到年龄相关衰退的影响。
年龄相关甲基化变化与细胞类型相关性
- 为了理解年龄相关甲基化变化如何与细胞类型相关性相关,量化了未关联细胞类型中细胞类型特异性UMR和LMR甲基化转变。
- 观察到细胞类型间甲基化距离与衰老相关甲基化变化幅度之间的强反向关系,表明定义密切相关细胞类型的调控区域更容易受到年龄相关表观遗传失调的影响。
- 这种模式仅见于LMRs,表明远端增强子的表观遗传签名比更广泛活跃的启动子更容易受到年龄相关变化的影响。
- 此外,随年龄失调的区域倾向于更接近调控元素,暗示染色质背景可能促进已经可及位点的甲基化重塑。
- 这些结果提示潜在 underlying 密切相关细胞类型 distinct 表型功能的调控元素可能更容易受到年龄相关功能障碍的影响。
年龄相关DMRs富集
- 差异甲基化分析揭示年龄相关DMRs显著富集在细胞类型特异性顺式调控区域,表明这些位点是年龄相关表观遗传漂移的优先靶标。
- 这种富集反映表观遗传身份的进行性丧失。具体而言,细胞类型在年轻小鼠中低甲基化的区域获得甲基化,同时在其他细胞类型特异性的顺式调控区域显示年龄相关低甲基化。
- 这种表观遗传细胞类型身份的分歧在PT亚型水平进一步明显,其中一个区段中的低甲基化DMRs富集在相邻PT区段的LMRs中。
与损伤的重叠
-
研究发现表明定义细胞身份的调控元素优先受到年龄相关甲基化变化的影响。
-
为了检查这些衰老相关签名是否与肾脏损伤后改变的调控区域重叠,分析了小鼠缺血-再灌注损伤(IRI)模型的单核ATAC-seq数据,定义解决和未解决的PT修复状态。
-
年龄相关DMRs显著富集在损伤相关可及区域内(倍数富集=2.95,P<0.01,置换检验)。这种重叠识别了在衰老和损伤背景下均有响应的调控位点。
结果部分 4:疾病相关DNA甲基化时钟年龄加速在肾小管上皮细胞中最为显著
疾病与年龄加速
- 为了研究肾脏疾病是否与DNA甲基化时钟年龄加速相关,比较了肾脏疾病患者与年龄匹配健康对照的单细胞甲基化组。
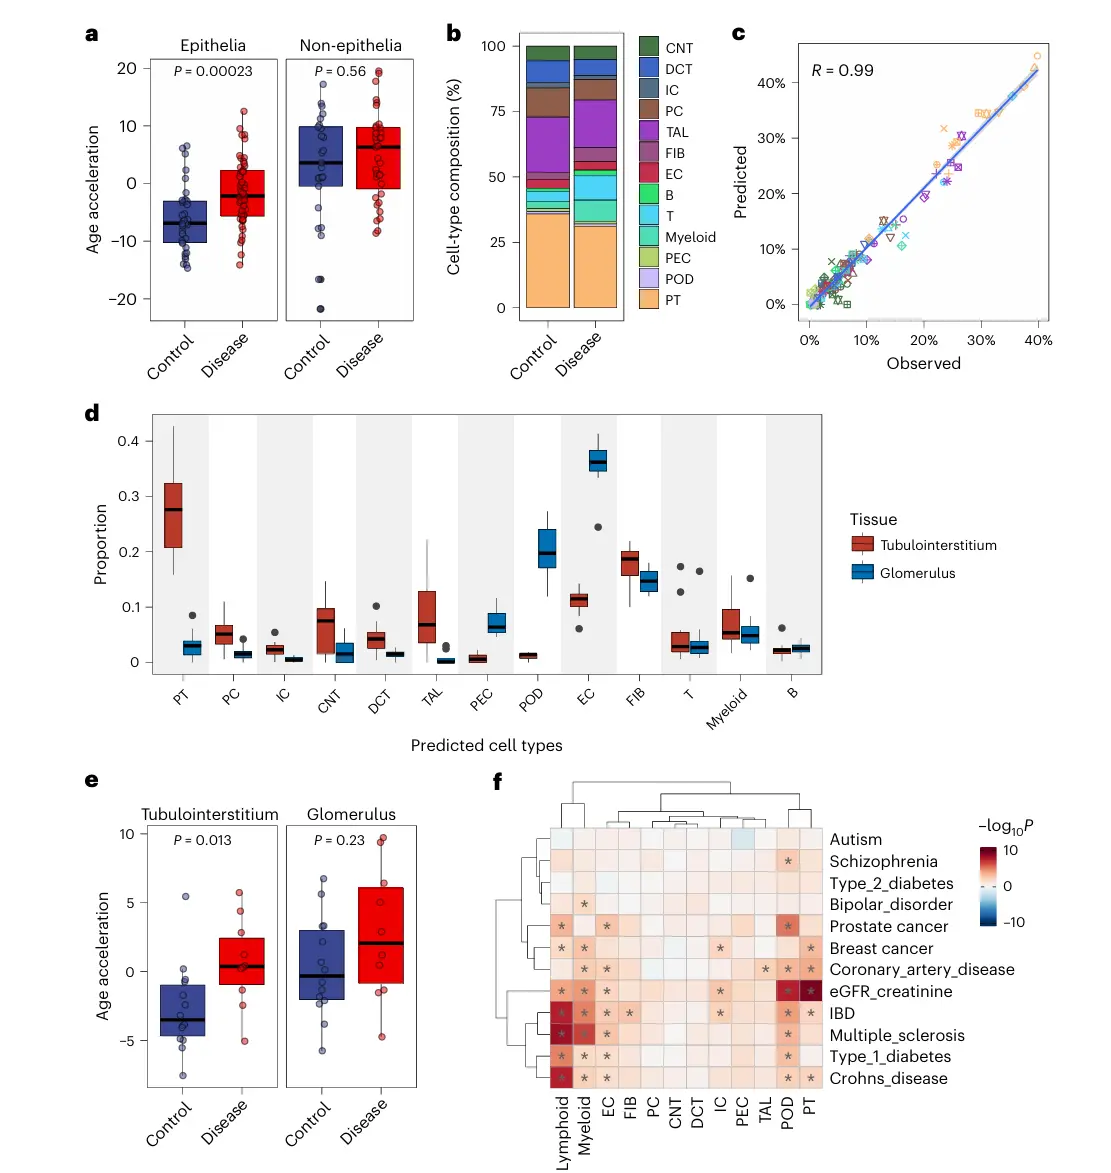
- 对样本水平bulk甲基化组的初步分析揭示疾病队列中显著的表观遗传年龄加速(P=0.01,Wilcoxon秩和检验)。
- 通过检查技术偏差进一步确保这一发现的稳健性,通过下采样读取和采用主成分训练的Horvath时钟版本,该版本在低覆盖甲基化组数据中表现稳健。年龄预测在浅覆盖(低至约3×)下保持准确,支持表观遗传年龄计算的可靠性。
细胞类型水平分析
- 细胞类型水平分析显示肾脏疾病中的表观遗传年龄加速由上皮细胞主导。
- 来自疾病队列的上皮细胞伪bulk甲基化组显示相对于健康对照平均时钟年龄加速4.8年(P=2.3×10⁻⁴),而非上皮群体没有显示显著差异。
- 这种上皮特异性年龄加速似乎是由于细胞内在表观遗传变化,而非细胞类型组成的变化,因为疾病样本显示相似的上皮比例,同时显示成纤维细胞和免疫细胞增加。
验证
- 为了验证发现,使用独立生成的来自激光显微切割肾脏小管间质(n=15)和肾小球(n=15)组织的bulk全基因组亚硫酸氢盐测序(WGBS)数据。
- 使用单细胞甲基化图谱作为参考进行细胞类型去卷积,以检查bulk甲基化组数据中的细胞类型比例。
- 这种去卷积方法识别出预期的小管间质样本中肾小管上皮细胞的富集和肾小球样本中POD、内皮细胞和壁上皮细胞的富集。
- 来自这些去卷积细胞群体的表观遗传时钟估计确认疾病患者的年龄加速在小管上皮细胞富集的组织中最为显著。
遗传风险富集
-
基于先前发现未解决或适应不良修复的PT状态改变与慢性疾病进展相关,试图将肾脏细胞类型的调控元素与遗传肾脏疾病风险联系起来。
-
使用分层连锁不平衡分数回归(S-LDSC),观察到PT特异性DMRs对估计肾小球滤过率(eGFR)遗传力的强富集。
-
这种富集也见于定义从健康到改变状态转变的DMRs(FDR=0.004),从而直接将这种细胞状态的表观遗传失调与肾脏疾病的遗传风险变异联系起来。
结果部分 5:改变的近端小管细胞显示增加的甲基化异质性并与衰老的转录签名重叠
状态相关表观遗传变化
- 为了定义状态相关表观遗传变化,比较了同一供体内改变和健康状态PT细胞。这种设计减少了来自个体间遗传变异、实际年龄和性别的混杂,允许分离与改变状态相关的表观遗传转变。
- 这里,改变PT细胞状态指定代表人类肾脏图谱(HKA)中定义的自适应、适应不良和退行状态的组合,分组在一起以捕获肾小管损伤的表观遗传变化。
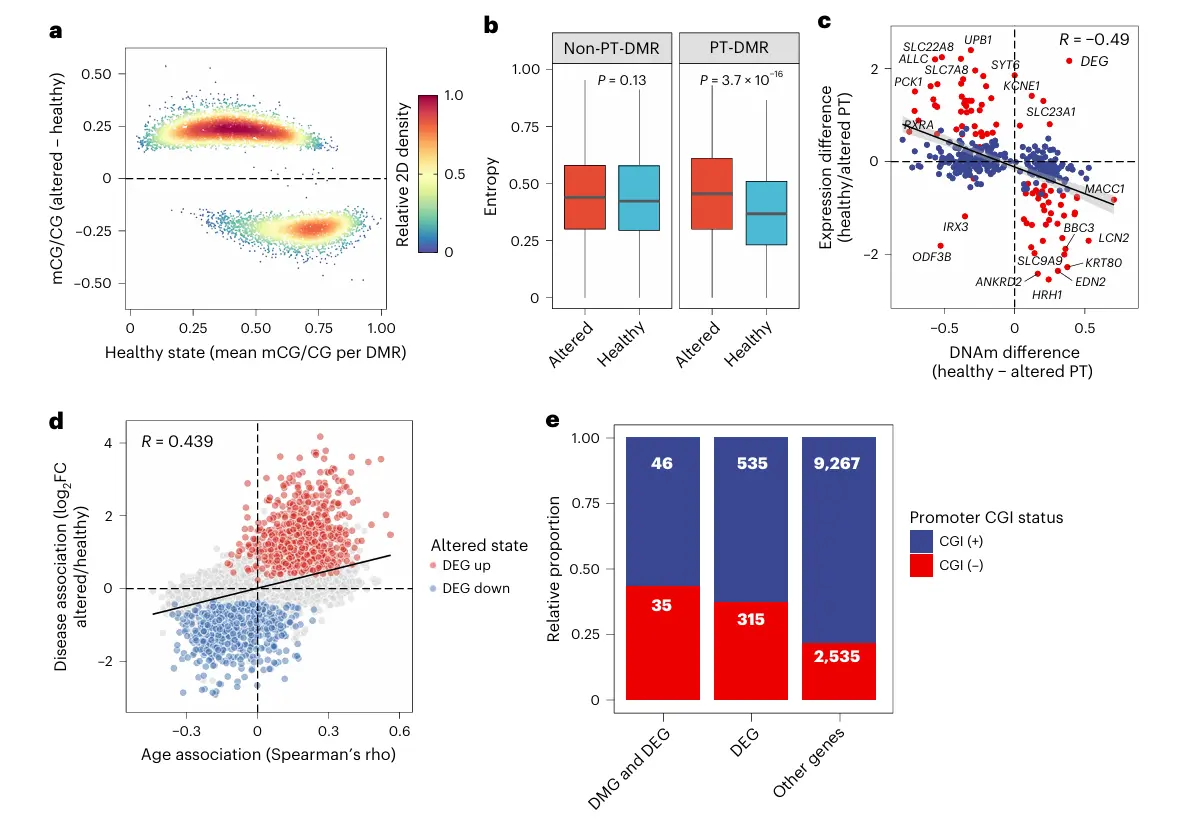
- 这揭示细胞状态之间广泛的表观遗传改变,趋势是甲基化获得,因为63%的差异甲基化是高甲基化的。
- 功能注释识别出包括对层流流体剪切应力的响应(FDR=2×10⁻¹¹)和组蛋白脱乙酰化调控(FDR=7.8×10⁻⁹)在内的术语的显著富集,暗示细胞状态之间表观遗传景观的显著转变。
- 此外,这些甲基化变化显著富集在定义健康肾小管身份的PT特异性DMRs内(倍数富集=1.84,P<0.01),表明稳态PT的调控区域在疾病中被特异性失调。
甲基化异质性
- 除了健康状态和改变状态PT细胞群体之间的平均甲基化水平差异外,改变状态PT细胞显示增加的局部甲基化异质性。
- 单分子共甲基化分析揭示改变状态细胞中相邻CpGs之间的一致性降低和甲基化熵增加。这种差异在PT特异性调控区域最为显著,与局部甲基化协调降低一致。
TF基序
- 接下来询问健康和改变PT状态在维持PT身份的TF基序处是否存在差异。
- 匹配的单细胞ATAC-seq数据识别健康PT细胞中可及性更大的基序,包括来自HNF、RXR和PPAR家族的基序。
- RXR相关基序的可及性改变与先前发现一致,即这些位点的染色质可及性在AKI期间动态调控,RXRα激活可以减轻随后的纤维化。
- 改变状态PT细胞在这些谱系相关基序处显示增加的甲基化,表明这些调控程序活性降低可能伴随肾脏疾病中PT身份的丧失。
甲基化与表达的关系
- DNA甲基化差异与局部基因表达差异相关,DMRs处的甲基化与邻近基因表达之间呈负相关(Spearman's rho=-0.49)。
- 接下来评估区分改变与健康状态PT细胞的转录变化是否与年龄相关转录变化相关,使用来自20-90岁个体的72个非患病肾脏的单核数据。
- 年龄相关PT基因包括CXCL1、IGFBP6和KCNB2,总体年龄关联评分与改变与健康PT表达变化正相关。
- 这种重叠表明改变PT细胞共享正常衰老相关转录程序的组成部分。
CGI-less基因
-
最后,在改变状态中既差异甲基化又差异表达的基因富集缺乏CpG岛的基因(CGI-less)。
-
CGI-less基因通常位于抑制性异染色质内,包括核纤层相关结构域,其错误表达与衰老相关退行相关。
-
这些发现表明改变状态PT细胞优先失调嵌入抑制性染色质结构的基因,并提出高阶染色质组织贡献于这些表达变化的可能性。
结果部分 6:疾病相关PT甲基化-表达签名定位于修复相关空间生态位
空间分析
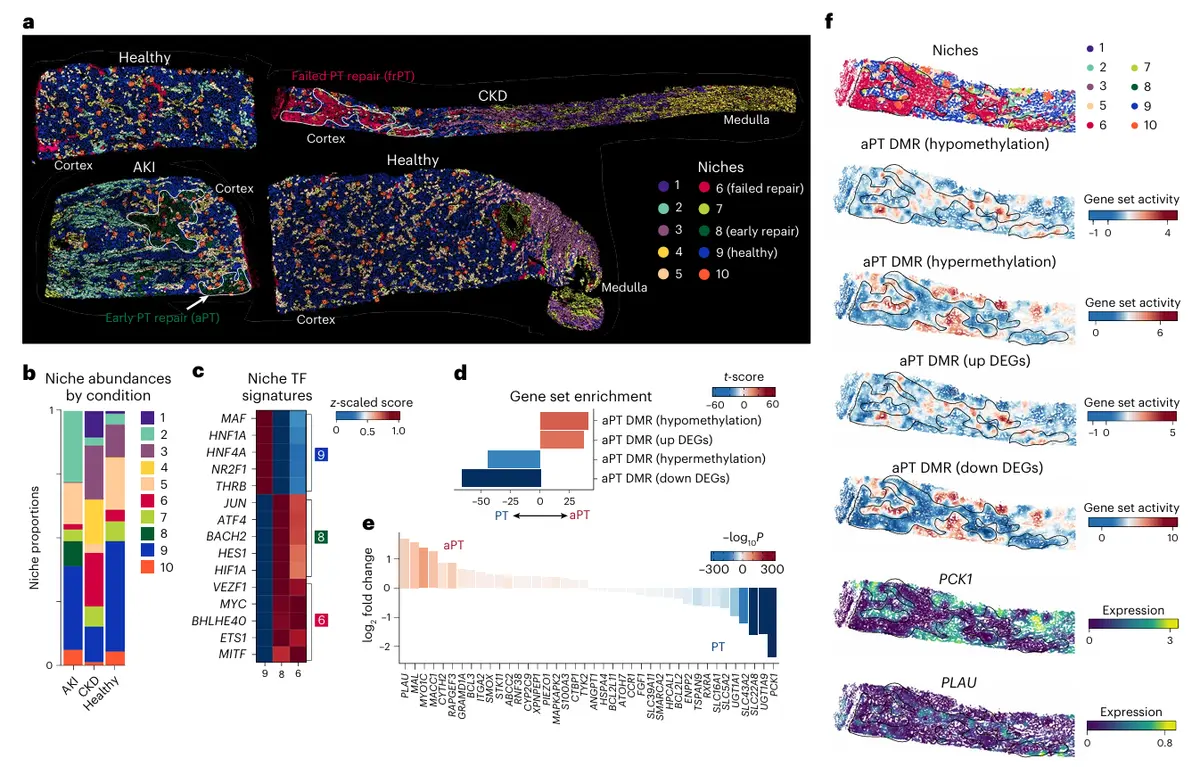
- 为了描述甲基化相关基因表达变化的空间背景,使用10x Xenium平台在四个代表性样本中分析靶向5,000个基因,涵盖健康、AKI和CKD组织。
- 与HKA整合解析了从皮质到髓质结构的细胞类型,以及与解决或未解决修复相关的自适应或适应不良PT状态。
- 这些细胞类型进一步基于其空间共定位组织成生态位,以解析正常肾脏结构(例如生态位10肾小体)以及 distinct 早期(生态位8)或失败(生态位6)上皮修复生态位。
- 一致地,这些生态位显示从健康(HNF4A)到自适应/适应不良(NFkB和SOX4)PT TF活性的转换。
- 此外,富含AKI样本的早期PT修复生态位8显示增加的早期应激反应TF活性(ATF4、JUN和BACH2)和增加的E2F通路活性。
- 或者,富含CKD的失败修复生态位显示与失败修复PT状态相关的更高TF活性(BHLHE40、MYC和MITF)和与纤维化相关的升高WNT信号。
GSEA分析
-
基因集富集分析(GSEA)确认改变状态PT低甲基化基因在Xenium改变PT细胞中富集,改变状态PT高甲基化基因在健康状态中富集。
-
这与在10x Multiome数据中这些状态之间差异表达的基因趋势一致。
-
PCK1,编码对正常PT功能至关重要的糖异生代谢途径的关键组分,被发现是改变状态PT细胞中高甲基化和下调的顶级基因。
-
或者,与细胞极性和粘附相关的基因在改变状态PT细胞中低甲基化和上调(PLAU、MYO1C和CYTH2),与这种状态相关的间充质样转变一致。
-
空间映射显示DMR相关基因签名在健康PT生态位(生态位9)和富含早期或失败修复状态的生态位(早期修复生态位8和失败修复生态位6)之间的差异富集。
结果部分 7:健康参考PT特异性染色质区域富集在改变PT细胞中失调的基因
scMethyl-Hi-C
- 为了确定在改变PT细胞中失调的基因是否优先占据PT特异性高阶染色质结构,使用scMethyl-Hi-C从单个健康参考供体生成scMethyl-Hi-C谱,该技术同时捕获同一细胞内的3D染色体构象和DNA甲基化组。
- 获得3,072个高质量谱和超过3亿个长程染色体接触。
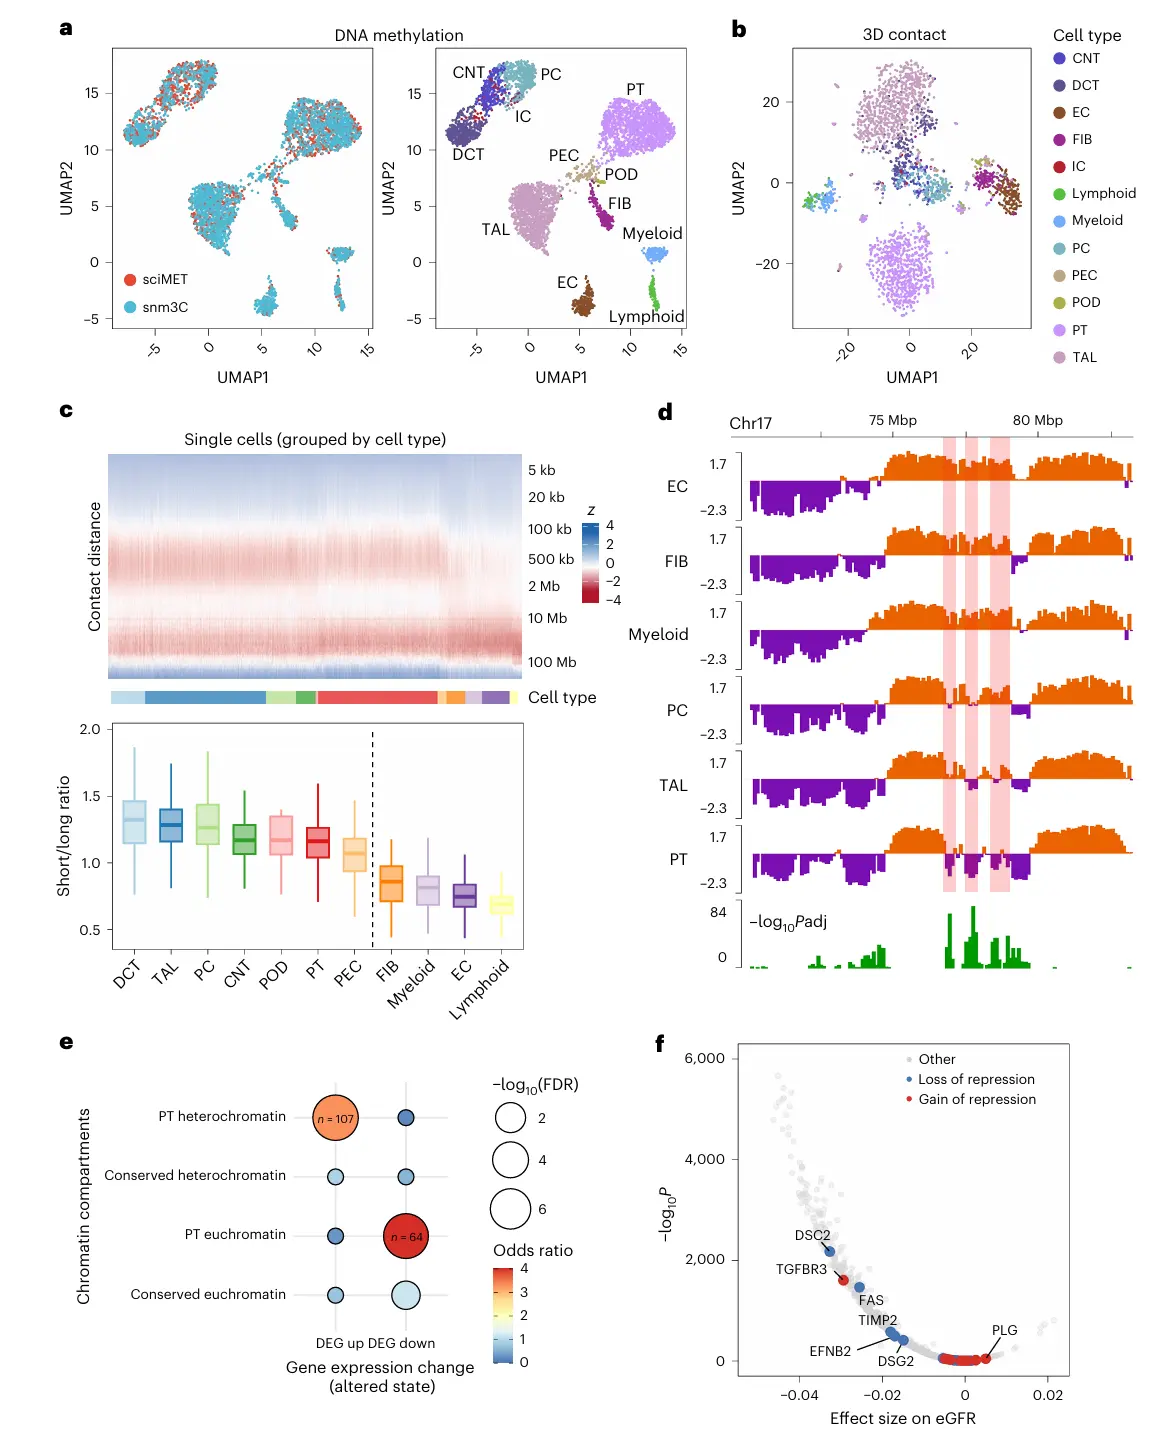
- 甲基化组分与sciMET参考图谱的整合显示两种模态之间没有显著批次效应,染色质接触谱分离主要肾脏细胞类型。
全局染色质组织
- 全局染色质组织分析揭示染色质接触分布的细胞类型特异性差异。
- 上皮细胞显示比非上皮细胞类型更高的短程(至多2 Mbp)与长程(2-10 Mbp)接触比率。因为短程接触贡献于局部染色质组织和基因调控,这种模式表明上皮细胞可能更强烈地依赖局部3D染色质相互作用。
PT特异性染色质区室
- 为了检查在改变PT细胞中失调的基因是否优先占据PT特异性染色质环境,使用健康参考scMethyl-Hi-C数据在250-kb分辨率定义细胞类型特异性A和B区室。
- 将PT区室评分与其他肾脏细胞类型比较以识别PT特异性区室。
- 在改变PT细胞中上调的基因显著富集在PT特异性B区室内,而下调基因富集在PT特异性A区室内。
- 通过将这些区室分配与改变状态甲基化和表达变化整合,识别出107个与推定抑制丧失一致的区域和64个与推定抑制获得一致的区域。
- 大多数区域显示一致的甲基化变化,在70%的推定抑制丧失区域中观察到低甲基化,在78%的推定抑制获得区域中观察到高甲基化。
基因功能
- 推定抑制丧失区域内的基因包括炎症和应激反应基因,如CXCL1、CXCL2、CXCL3和CXCL6,其中一些与先前描述的衰老相关分泌表型谱重叠。
- 这些区域还包含促纤维化细胞外基质和受体基因,包括ITGA2和ANTXR1,以及与改变上皮状态相关的TFs,包括HMGA2、ETS1和BACH2。
- 这些发现识别了PT特异性染色质背景,其中改变的甲基化和基因表达与炎症和重塑相关程序重合。
临床相关性
-
为了检查这些基因的潜在临床相关性,将推定抑制丧失基因集与来自54,219名参与者的UK Biobank Olink血浆蛋白质组数据整合。
-
这些区域中几个基因编码的蛋白质(包括DSC2、DSG2和TIMP2)的血浆水平与eGFR负相关。
-
总之,这些分析将改变状态甲基化和表达模式与PT特异性染色质结构联系起来,并提名与肾功能相关的候选基因。
讨论
核心发现
- DNA甲基化年龄加速已在慢性疾病中报道,但bulk分析掩盖了负责任的细胞群体。
- 使用细胞类型分辨的单细胞DNA甲基化组与匹配的转录组和染色质可及性数据、空间转录组学和健康参考3D染色质图谱整合,发现疾病相关DNA甲基化年龄加速在肾小管上皮细胞中最为显著。
- PT特异性DMRs也富集eGFR遗传力,将细胞类型特异性调控变异与肾功能相关位点联系起来。
改变PT细胞的特征
- 改变PT细胞显示增加的局部甲基化异质性、谱系相关程序的失调以及与正常人类肾脏衰老的转录重叠。
- 具有协调甲基化和表达变化的基因优先是CGI-less,这一类富集谱系特异性基因和抑制性染色质背景。
- 这些发现支持与适应不良修复相关的表观遗传和转录衰老样状态,尽管由损伤、炎症、应激和去分化诱导的重叠分子签名阻止了明确归因于加速生物学衰老或细胞衰老。
染色质区室
- 改变PT状态伴随局部甲基化协调降低和PT特异性染色质区室内基因的优先失调。
- 与抑制降低一致的区域包含炎症趋化因子和与上皮状态转变相关的TFs。
- 这些基因中几个编码的蛋白质(包括DSC2、DSG2和TIMP2)的血浆水平在一般人群中与eGFR负相关,将这些分子特征与临床相关的肾脏特征联系起来。
上皮细胞的脆弱性
- 上皮细胞还表现出更高的短程与长程染色质接触比率,与局部染色质组织对上上皮基因调控的更大贡献一致。
- 这一特征可能反映代谢特化肾小管细胞的调控需求,这些细胞协调溶质载体、离子通道和线粒体途径以维持肾脏转运功能。
- 然而,这种密集的调控需求可能使上皮细胞在慢性应激期间本质上更容易受到结构紊乱的影响。
- 此外,空间转录组学进一步将改变PT状态定位到炎症修复生态位,表明免疫浸润间接贡献于这种染色质不稳定性。来自浸润免疫细胞的旁分泌信号,如促炎细胞因子和活性氧的释放,触发邻近上皮细胞中深刻的细胞内应激反应。长期暴露于这种炎症微环境可以改变关键表观遗传修饰剂的活性,在加剧适应不良状态的广泛染色质重塑中起关键作用。
跨物种图谱
- 跨物种肾脏表观基因组图谱还揭示核心肾脏细胞身份的广泛保守性,但在与应激反应和基因组维持相关的上皮远端调控元素处有更大的分歧。
- 这些分歧区域可能贡献于衰老和损伤的物种特异性反应,在跨实验模型转化机制发现时应考虑。
- 因此,图谱为研究肾脏衰老和疾病中的保守和物种特异性调控程序提供了资源。
局限性
- 研究中使用的衰老和急性损伤小鼠模型可能无法完全捕获人类慢性疾病的复杂、多方面性质。未来需要纵向研究来明确建立表观遗传衰老与肾脏疾病进展之间的因果联系。
- 跨物种比较主要聚焦于 orthologous bins 和映射的DMRs。因此,物种特异性序列和人类遗传变异可能引入本研究中未完全考虑的额外效应。
- 小鼠队列仅由雄性动物组成。鉴于PT生理、代谢和基因调控中充分记录的性别依赖性差异,观察到的物种特异性表观遗传分歧和年龄相关变化可能受到性别偏见的影响。未来需要纳入整个生命周期中雄性和雌性队列的研究,以完全解开保守表观遗传机制与性别特异性调控网络。
- 人类疾病队列的小样本量和异质性限制了进行病因分层分析的能力。因此,研究结果可能反映对慢性肾损伤的广义表观遗传反应,未来需要更大、病因匹配的队列来分离疾病特异性表观遗传细微差别。
- 虽然scMethyl-Hi-C数据为健康肾脏细胞类型提供了结构支架,但依赖单个参考供体限制了捕获个体间3D结构变异的能力。由于scMethyl-Hi-C的相对稀疏分辨率,可能低估了染色质环破坏的全部程度。
- 尽管有这些局限性,研究共同提供了对肾脏细胞类型水平表观基因组的宝贵见解,为未来研究和破译基于全基因组甲基化的肾功能生理衰退提供了基础资源。
方法
伦理声明和样本收集
- 遵守所有与研究相关的伦理法规。所有人类样本实验遵循相关指南和法规。
- 人类肾脏样本从成年个体获得,包括健康对照和肾脏疾病患者(肾切除术或肿瘤邻近健康组织)。
- 来自六只雄性C57BL/6J小鼠的肾脏组织,包括三只4个月大的年轻小鼠和三只20个月大的衰老小鼠,从The Jackson Laboratory购买。
- 作者没有饲养、繁殖、治疗或对活体动物进行实验程序,仅分析商业获得的组织。
- 所有样本通过组织切碎、酶消化和细胞核分离处理成单核悬液。
- 人类肾脏样本由肾脏转化研究中心(KTRC)作为人类生物分子图谱计划(HuBMAP)的一部分收集。研究方案由华盛顿大学机构审查委员会批准(编号201102312)。
单细胞甲基化组文库制备
- 从冷冻OCT包埋组织切片分离细胞核。对于人类样本,每个供体收集16-23个切片(10-μm厚度),对于小鼠样本,每只动物合并5-7个切片。
- 按照Scale Biosciences sciMET协议进行单细胞DNA甲基化测序。简言之,首先将细胞核分配到96孔板中并在原位进行Tn5转座酶标记,然后汇集所有细胞核并重新分配到96孔板中。
- 然后在重新分配的板中进行亚硫酸氢盐转化,随后进行索引引物延伸。这种两级索引设计独特地标记来自每个个体细胞核的DNA,结合组合条形码,允许许多单细胞甲基化组在一个文库中。文库用标准Illumina引物PCR扩增和纯化。
测序和数据分析
- sciMETv2和scMethyl-Hi-C文库在Illumina NovaSeq S4平台上测序,使用150-bp和100-bp双端读取。
- 读取使用Bismark(v0.24)比对到人类(hg38;RefSeq 3 Feb 2022)或小鼠(mm39;RefSeq 24 Jan 2020)参考基因组,使用Bowtie2(v2.5.1)对齐。
- 去重后,每个细胞获得平均约0.8百万个独特CpG位点的覆盖。过滤少于200,000个CpG位点的细胞用于下游分析。
- 计算每个细胞的分数甲基化水平。使用主成分分析(PCA)进行降维,随后使用均匀流形近似和投影(UMAP)可视化。
细胞类型注释
- 通过评估细胞类型特异性标记基因座上不同的甲基化模式进行细胞类型注释。
- 为了实现近端和远端小管亚型的高分辨率注释,将甲基化数据与匹配的多模态肾脏图谱(RNA和染色质可及性)整合。
- 使用scGLUE(v0.3.2)Python包,将sciMET数据与匹配的10x多组学参考整合。通过投影这些 distinct 模态(DNA甲基化和ATAC)到共享潜在空间作为先验知识图,scGLUE使高分辨率标签的直接计算转移成为可能,允许区分健康和改变的小管细胞状态。
物种间 orthologous 基因组区域的鉴定
- 使用交互式 reciprocal 提升方法结合同源信息鉴定人类(hg38)和小鼠(mm39)基因组之间的推定 orthologous 基因组区域。
- 将hg38基因组分割为非重叠的5-kbp bins。使用UCSC liftOver工具进行映射,使用互惠最佳链对齐链文件(hg38ToMm39.over.chain.gz, mm39ToHg38.over.chain.gz)和最小映射分数(minMatch)为0.7。
跨物种数据整合和可视化
- 使用Scanpy(v1.11.5)和Harmony(harmonypy v0.0.9)进行人类和小鼠甲基化组数据整合和批次校正。
- 在初始过滤以去除缺失值超过90%的 orthologous 区域后,使用k-最近邻(KNNImputer,n=5)填补缺失甲基化值。
- 数据集连接,仅保留物种间共同 orthologous 区域。选择高变特征(n=10,000),缩放和降维通过PCA(50个成分)进行。
- 将Harmony校正应用于PCA嵌入以校正跨物种批次效应。使用校正后的邻域图计算Leiden聚类和UMAP嵌入。
跨物种差异区域分析和共识参考面板
- 将来自跨物种分析的Leiden cluster映射到共识细胞类型,每个细胞类型和每个物种内差异甲基化的区域被分开识别(Wilcoxon秩和检验)。
- 最终保守参考面板中包含的区域使用严格的跨物种标准:(1)在两个物种中目标细胞类型与其余之间的平均甲基化差异超过0.3,(2)两个物种中目标与至少80%个体其他细胞类型之间的甲基化差异大于0.2。
细胞类型特异性调控元素的鉴定
- 为了鉴定推定调控元素,使用MethylSeekR R包(v1.5)基于DNA甲基化模式分割基因组。
- 鉴于单细胞数据的稀疏性,首先为每个注释细胞类型通过汇集分配到该cluster的所有细胞核生成伪bulk甲基化组。
- 算法将基因组分割为UMRs,其特征为未甲基化的CpG岛,通常对应启动子(<10%甲基化),和LMRs,其特征为CpG贫乏区域中间甲基化(10-50%),通常对应远端调控元素或增强子。
- 位于未定义基因组序列(N-masked)或性染色体上的区域被排除分析。
- 为了鉴定细胞类型特异性调控元素,跨所有肾脏谱系进行成对比较重叠分析。
- 如果UMR或LMR在目标细胞类型中被分割为区域但在任何其他细胞类型中未被分类为UMR或LMR(保持高甲基化),则定义为细胞类型特异性。
- 在所有注释细胞类型中被鉴定为UMRs或LMRs的区域被分类为共享。
差异甲基化分析
- 使用两步方法鉴定细胞类型特异性DMRs。首先,使用find_markers函数从wgbstools(v0.2.2)鉴定候选DMRs,使用参数要求每个区域至少50 bp且至少四个CpGs。
- 过滤区域以保留在每种细胞类型中具有3×最小测序覆盖的基因座。
- 细胞类型特异性区域通过FDR<0.05、针对每个 distinct 细胞类型甲基化差异≥15%以及相对于所有其他细胞类型平均值的≥20%差异定义。
- 使用DSS(v2.58)评估健康状态和改变状态上皮细胞之间的差异甲基化。DSS考虑测序深度和生物学重复的变异,为统计显著的DMRs提供稳健检测。FDR<0.05的区域被认为显著差异甲基化。
细胞类型去卷积
- 使用UXM(v.2024)从bulk DNA甲基化数据估计细胞类型比例。UXM的参考细胞类型标记从上述差异甲基化分析中鉴定的top 250细胞类型特异性标记区域中选择。
- 为了评估稳健性并避免样本驱动的标记选择偏差,进行留一交叉验证。对于每次迭代,排除一个样本,从剩余样本重新鉴定细胞类型标记,并在排除的样本上评估基于UXM的细胞类型比例预测。
表观遗传时钟分析
- 为了估计DNA甲基化年龄,应用已建立的DNA甲基化时钟。为了增强稳健性并减轻稀疏性,在分析前按供体按细胞类型聚合甲基化数据。
- 具体而言,使用Horvath时钟的基于主成分(PC)的实现,该实现经过重新训练以最小化单个CpG测量固有的噪声。
- 鉴于细胞类型比例差异很大(例如POD约占2%,PT占肾脏细胞总数的25-35%),评估DNA甲基化时钟准确性是否受测序深度影响。
- 每个下采样在每个覆盖水平重复十次。随后,计算每个数据集的DNA甲基化年龄,并将这些年龄与供体的实际年龄进行比较。
- 表观遗传年龄加速指标也计算为通过回归DNA甲基化年龄对实际年龄获得的残差。
甲基化单倍型块的鉴定
- 按照Guo等人描述的方法鉴定甲基化单倍型块。简言之,基于相邻CpG位点之间的共甲基化使用连锁不平衡度量定义单倍型块,该度量测量CpG对之间甲基化状态的一致性。
- 包含至少四个相邻CpG位点且成对r²值大于0.5的基因组区域被指定为甲基化单倍型块。
- 在每个块内,使用mHapTk工具包(v.2022)计算甲基化熵(反映甲基化状态的可变性)和不一致读取比例(显示不一致甲基化的测序读取分数)。
- 少于五个测序读取覆盖的块被排除下游分析以确保稳健定量。
- 为了允许健康和改变细胞状态之间的无偏比较,在每个样本内匹配条件之间分析的细胞数量,从而最小化测序深度差异引起的潜在偏差。
Xenium数据生成和处理
- 使用Xenium In Situ平台(10x Genomics)和Xenium Prime 5K基因面板生成空间转录组数据。
- 制备福尔马林固定石蜡包埋组织切片(5-μm厚),按照制造商说明杂交和成像。
- 原始数据使用Xenium Analyzer软件(v.3.0.2.0)和分析管道(v.3.0.0.15)处理,以生成转录本坐标列表和细胞分割边界。
Xenium数据分析
- 数据采集后,进行质量控制过滤以去除总转录本计数少于五个的细胞和在任何细胞中未表达的基因。
- 对于细胞类型注释,使用人类肾脏图谱v.2(HKAv2)snRNA-seq参考进行整合分析。
- Xenium和单核RNA-seq计数使用Seurat(v.5.2.1)合并,并使用sketch子集(每个核50,000个细胞)使用reciprocal PCA(rPCA)策略进行整合。
- 然后在整合的rPCA嵌入上使用Pagoda2(v.1.0.12)进行聚类,并使用Seurat中的ProjectIntegration和ProjectData函数将cluster投影到全数据集。
- cluster最初基于每个cluster内的snRNA-seq标签和相应的细胞类型标记基因表达谱注释。
单细胞甲基-Hi-C文库制备
- 与sciMETv2并行,将scMethyl-Hi-C测序应用于人类肾脏细胞核的子集,以捕获甲基化和染色质接触。
- 方案从原位Hi-C步骤开始:细胞核用甲醛交联,用SDS透化并用DpnII消化。所得限制性片段末端用生物素化核苷酸填充并在原位邻近连接以连接相互作用的DNA片段。
- 连接后,细胞核用DRAQ7染色并分选到96孔板中(每孔一个细胞核)。亚硫酸氢盐转化直接在分选的细胞核上进行。
- 所得单链DNA使用随机引物方法转化为测序文库:使用高浓度Klenow片段掺入内部索引P5接头,随后使用Adaptase模块将P7接头连接到3'端。文库用双索引引物PCR扩增并汇集测序。
单细胞甲基-Hi-C数据分析
- 亚硫酸氢盐转化的Hi-C测序数据使用Bismark比对到hg38参考基因组,随后鉴定连接点以重建染色质接触。
- 结果,每个单细胞核产生两个主要数据集:(1)全基因组CpG甲基化调用集,(2)稀疏Hi-C接触图。
- 对于sciMETv2和甲基-Hi-C数据之间的跨模态整合和细胞类型注释,使用两种模态从匹配样本生成测序数据。
- 使用AllCools工具包(v.0.2.2)的run_harmony函数进行数据整合。具体而言,选择5,000个高变基因组bins(每个25 kbp)作为整合特征。进行PCA,随后进行基于Harmony的校正以对齐模态并准确注释跨数据集的细胞类型。
染色质区室分析
- 由于scMethyl-Hi-C从单个健康参考供体生成,所有A/B区室调用代表基线健康参考细胞类型组织。
- 为了分析高阶染色质结构,使用dchic(v.2.1)鉴定A/B区室。
- 首先,基于DNA甲基化分析衍生的细胞类型注释聚合单细胞接触文件,生成细胞类型特异性伪bulk Hi-C接触图。聚合接触矩阵以250-kb分辨率构建。
- 将dchic应用于这些伪bulk矩阵以调用染色质区室。简言之,对于每条染色体,接触矩阵被归一化,并对相关矩阵进行PCA以提取第一特征向量(PC1)。
- PC1值用于将基因组bins分配到区室A(活跃和正PC1)或区室B(非活跃和负PC1)。PC1值的符号使用基因密度定相,使得基因丰富区域与正PC1值相关。
- 为了定义细胞类型特异性和保守区室,将目标细胞类型的区室评分(PC1)与由所有其他肾脏细胞类型平均值构建的参考背景进行比较。保守区室定义为在细胞类型间保持相同区室状态的bins。
统计和可重复性
- 没有使用统计方法预先确定样本量。样本量由具有足够质量和元数据的知情同意人类肾脏组织以及商业获得的小鼠肾脏组织的可用性确定。
- 没有人类供体或小鼠样本在纳入后被排除,没有统计异常值被移除。
- 个体细胞核或细胞和基因组特征未通过预指定质量控制阈值的被排除,如相关方法子节所述。
- 研究是观察性的,实验未随机化。人类标本被去标识化,但数据收集和分析未对实验条件设盲,因为疾病状态和年龄是组分配和计划比较分析所必需的。
- 发现跨供体、小鼠和匹配分子模态评估,在数据可用的情况下。稳健性进一步使用留一供体验证和每个覆盖水平的重复测序深度下采样评估。
关键结论
-
跨物种单细胞肾脏表观基因组图谱:构建了包含57,619个高质量细胞核的DNA甲基化图谱,涵盖12名人类供体和6只小鼠,整合了单细胞多组学、空间转录组学和scMethyl-Hi-C。
-
上皮细胞主导的疾病相关年龄加速:疾病相关DNA甲基化时钟年龄加速在肾小管上皮细胞中最为显著(平均加速4.8年),而非上皮群体无显著差异。
-
PT特异性DMRs富集eGFR遗传力:PT特异性DMRs富集估计肾小球滤过率的遗传力,将细胞类型特异性调控变异与肾功能相关位点联系起来。
-
改变PT细胞的衰老样状态:改变PT细胞显示增加的局部甲基化异质性、谱系相关程序失调,以及与正常人类肾脏衰老的转录重叠。
-
CGI-less基因优先失调:具有协调甲基化和表达变化的基因优先是CGI-less,这一类富集谱系特异性基因和抑制性染色质背景。
-
空间定位到修复生态位:改变PT状态定位于炎症修复生态位,包括早期修复和失败修复生态位,伴随 distinct TF活性特征。
-
PT特异性染色质区室:在改变PT细胞中上调的基因富集在PT特异性B区室(抑制性),下调基因富集在PT特异性A区室(活跃性),识别出推定抑制丧失和获得区域。
-
临床相关性:推定抑制丧失区域内基因(包括DSC2、DSG2和TIMP2)编码的蛋白质血浆水平与eGFR负相关。
-
上皮细胞的内在脆弱性:上皮细胞显示更高的短程与长程染色质接触比率,可能反映代谢特化肾小管细胞的密集调控需求,使其在慢性应激期间本质上更容易受到结构紊乱的影响。
-
跨物种保守与分歧:核心肾脏细胞身份广泛保守,但在与应激反应和基因组维持相关的上皮远端调控元素处有更大的分歧。