上一节中,我们已经发现 p53 的 Phe19、Leu22、Trp23 和 Leu26 与 Mdmx 存在较多接触。
但这里还有一个很重要的问题:
这些残基现在的结构,已经把 Mdmx 的结合口袋填满了吗?
比如一个 Trp 已经伸进了疏水口袋,但它旁边可能仍然存在没有被利用的空间。
这时候,只看氢键 和Contact List就不够了。
我们需要开始看:
蛋白表面到底长什么样。
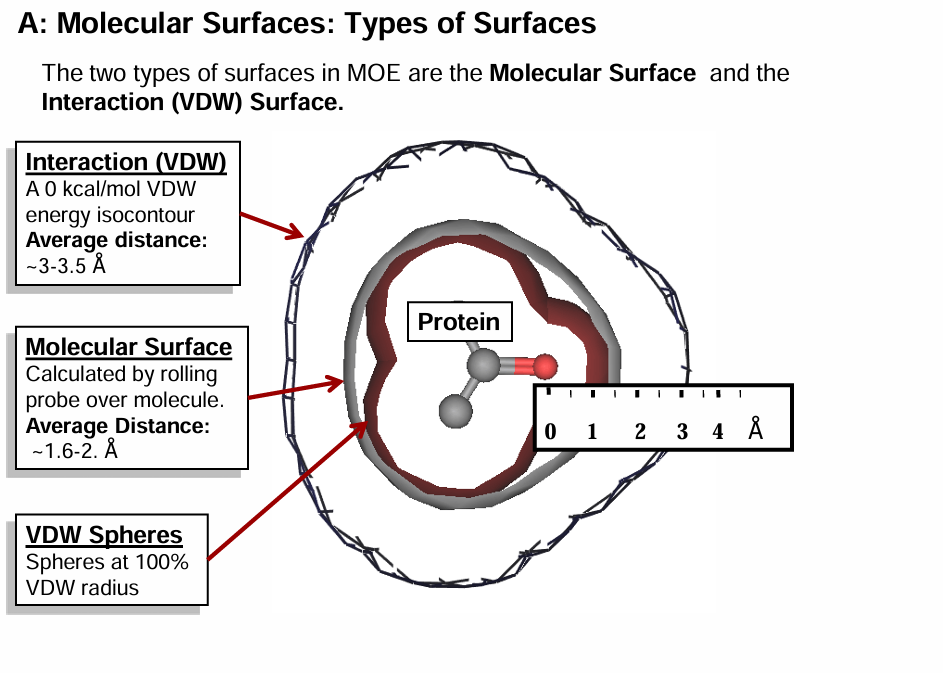
Molecular Surface:先看"蛋白真正的边界"
定义是:
通过一个探针在分子表面滚动来计算分子表面,平均距离大约位于原子核外 1.6--2 Å 左右。
它可以帮助我们直观地理解:
蛋白哪里凸出来,哪里凹进去,哪里形成了口袋。
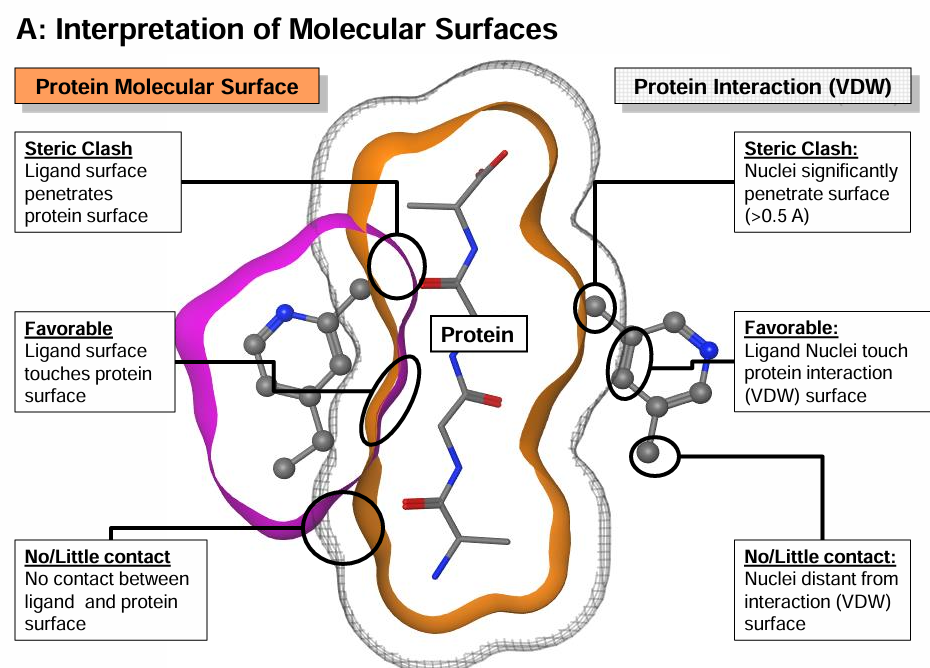
在蛋白--肽复合物中,如果肽的表面与蛋白 Molecular Surface 紧密贴合,说明二者在几何上具有较好的互补性。
如果两者之间存在明显空隙,则意味着这一块空间可能没有被充分利用。
反过来,如果肽的原子明显"钻进"蛋白表面,就可能出现steric clash。
课程对 Molecular Surface 给出的解释也很直接:
-
两个表面没有接触:说明相互作用有限;
-
肽表面刚好接触蛋白表面:属于较合理的接触;
-
肽表面明显穿入蛋白表面:提示空间冲突。
因此,Molecular Surface 更像是在回答一个几何问题:
这条肽是否真正"贴合"了这个蛋白口袋?
Interaction(VDW)Surface:看最佳接触位置
定义为一个 0 kcal/mol 的 van der Waals 能量等值面 ,平均距离大约在 3--3.5 Å。
它和 Molecular Surface 的观察方式稍微不同。
这里重点看的是:
肽的原子核相对于蛋白 VDW interaction surface 的位置。
如果 ligand atom 距离这个表面很远,说明两者接触较弱;
如果原子刚好接近这个表面,通常意味着比较合适的范德华相互作用接触;
如果原子明显穿透,就提示可能存在 steric clash。
课程把明显穿透超过约 0.5 Å 的情况作为空间冲突的例子。
因此:
Molecular Surface 更适合看形状互补;Interaction Surface 更适合观察原子是否处在合理的 VDW 接触位置。
回到 Mdmx--p53:哪些残基真正埋进了结合槽?
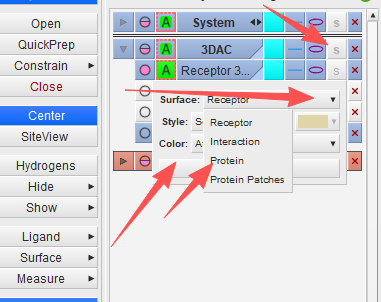
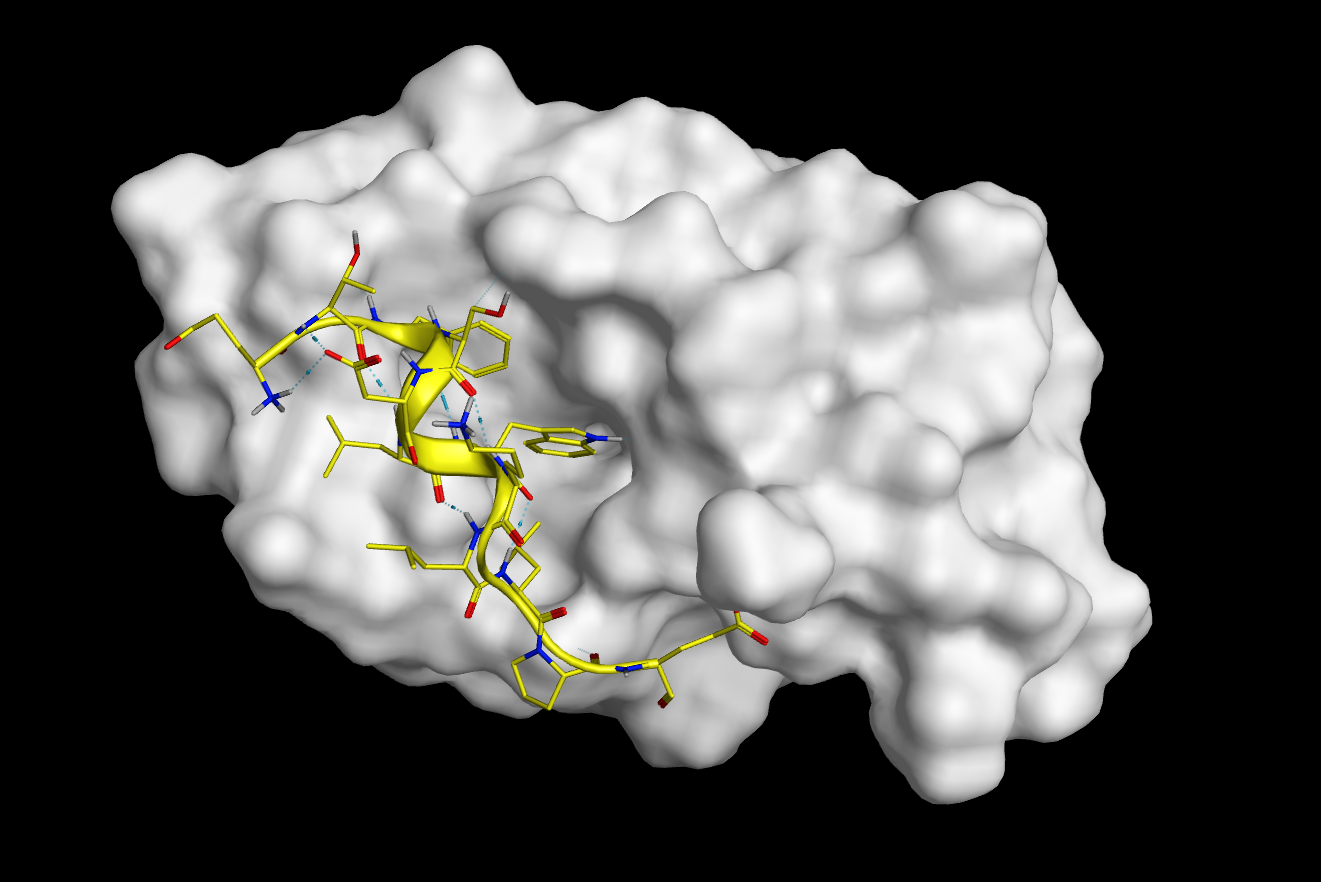
为 Mdmx 生成 Protein Surface。
此时可以非常直观地看到:
p53 的 Phe19、Trp23 和 Leu26 被埋在 Mdmx 的 peptide-binding groove 中。
这些位置的突变可能为后续 peptide optimization 提供机会。
这个信息和上一节的 Protein Contacts 正好形成呼应。
Protein Contacts 告诉我们:
这些残基接触很多。
Surface 又进一步告诉我们:
它们伸进了 Mdmx 的结合槽。
因此,这几个位置值得重点关注就不再只是因为"接触数量多",而是同时具有明确的空间基础。
只看口袋形状还不够:这个表面是疏水还是亲水?
MOE 还可以按照 Lipophilicity 给蛋白表面着色。
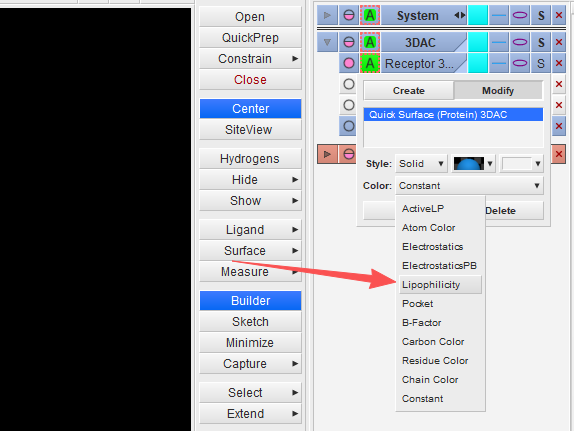
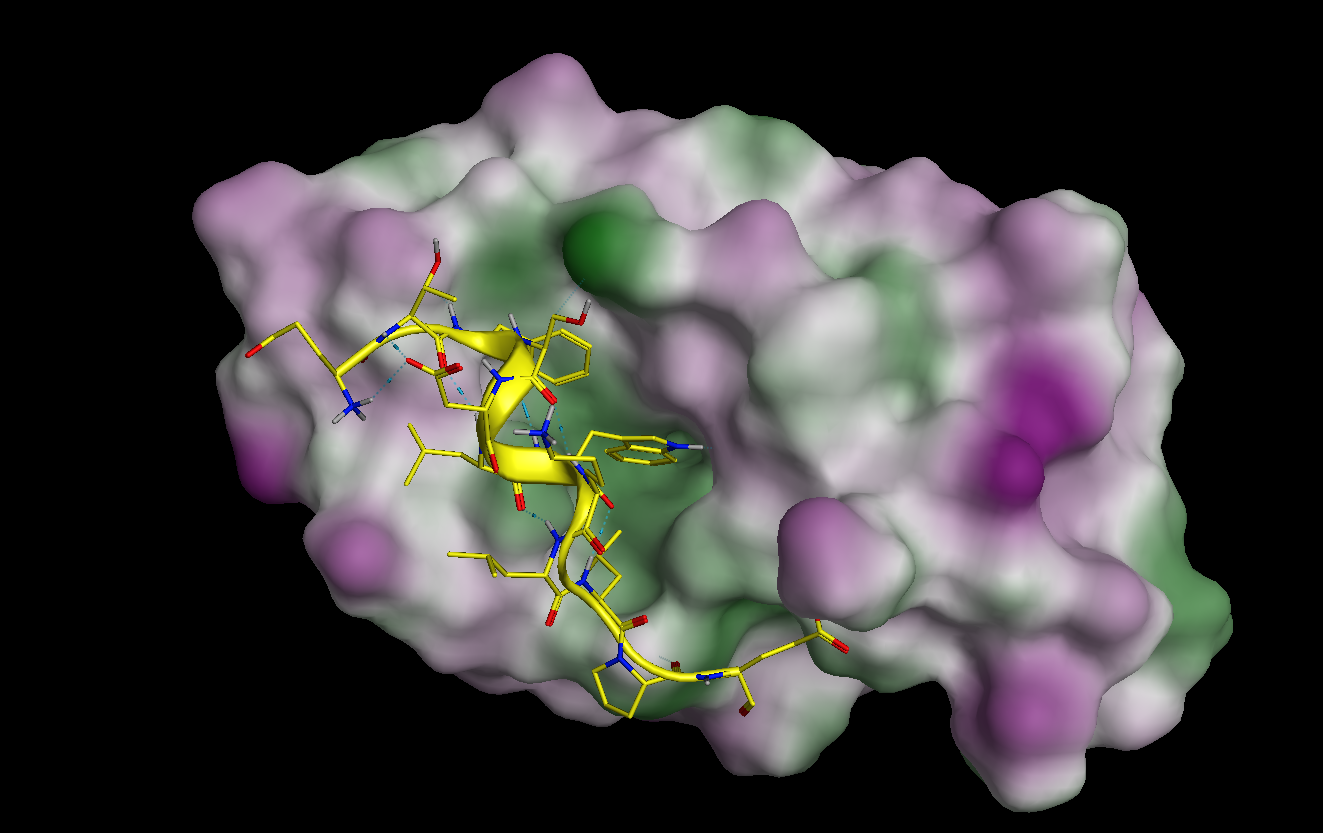
-
绿色代表疏水区域;
-
白色代表中性区域;
-
紫色代表亲水区域。
这一步非常重要。
因为同样是一个没有被完全占据的空间:
如果它位于明显的疏水表面附近,我们可能更希望引入疏水基团;
如果附近环境明显亲水 ,就需要考虑极性相互作用。
也就是说,从这里开始,我们已经不只是问:
"这里有没有空间?"
而是进一步问:
"这个空间喜欢什么样的化学基团?"
Protein Patches:把连续的疏水区域直接找出来
如果只是看整个 Lipophilicity Surface,有时候仍然不容易判断哪些区域真正形成连续的疏水斑块。
于是继续使用:
Surface → Protein Patches
来识别 Mdmx 表面的不同性质区域。
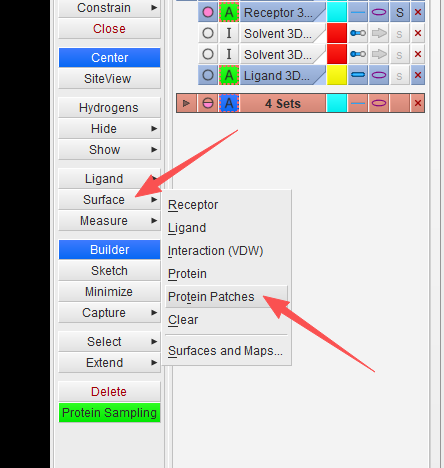
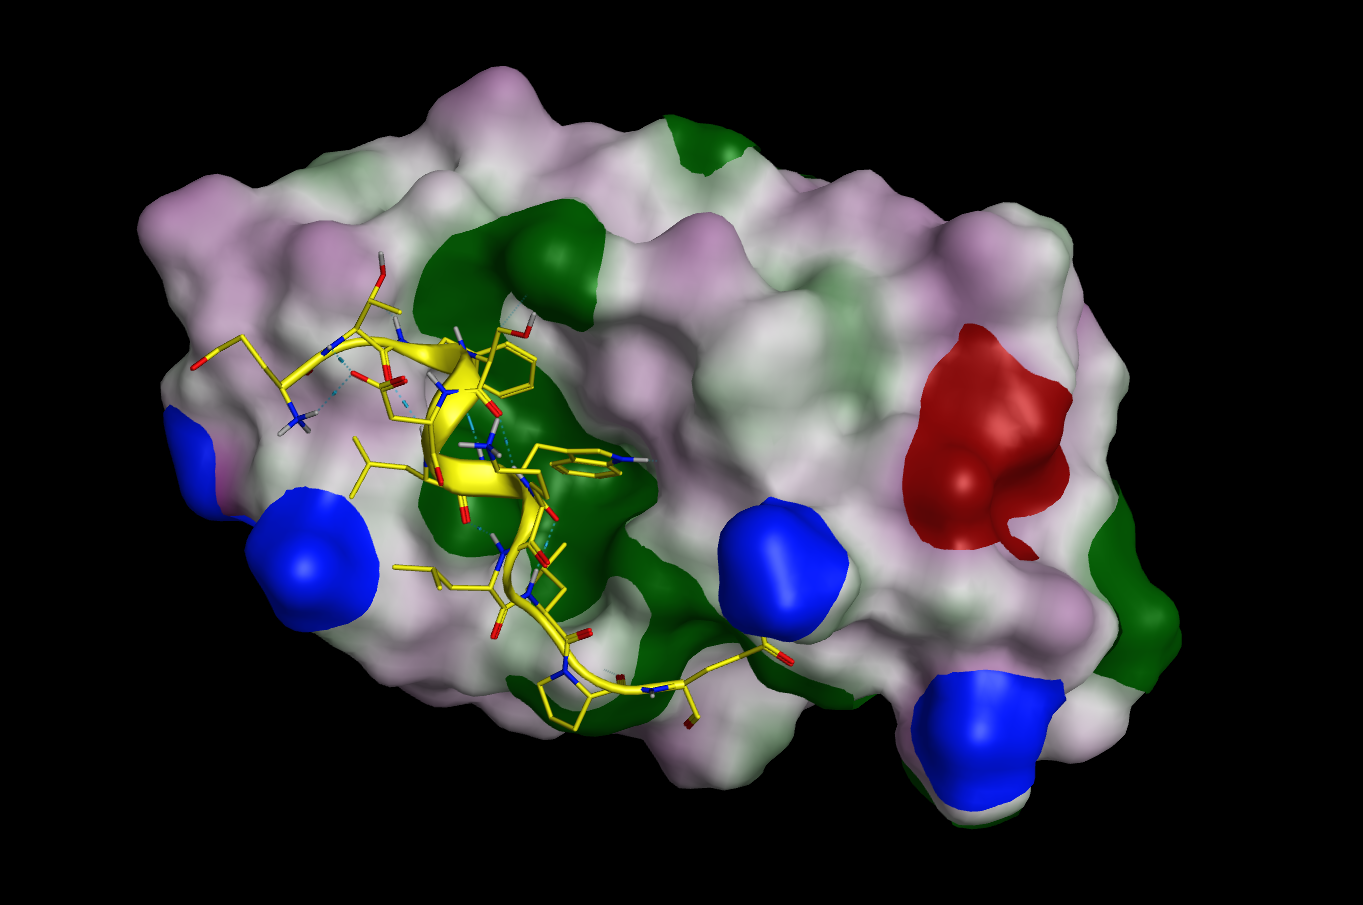
结果非常直观:
最大的 hydrophobic patch 位于 peptide-binding groove,也就是 p53 所结合的区域。
这和前面所有结果再次吻合:
Phe、Trp、Leu 这些疏水侧链之所以能够成为重要结合残基,并不是偶然的。
它们实际上正好位于 Mdmx 的疏水结合槽中。
于是我们开始得到一个更加完整的结合图景:
Contact Analysis
告诉我们谁和谁发生接触;
↓
Molecular Surface
告诉我们口袋的空间形状;
↓
Interaction Surface
告诉我们原子的 VDW 接触是否合适;
↓
Lipophilicity / Protein Patches
告诉我们这个空间偏好什么样的化学性质。
Surface 怎么帮助我们设计?
接下来:
把 p53 上的氢原子显示出来,同时观察 Interaction Surface。
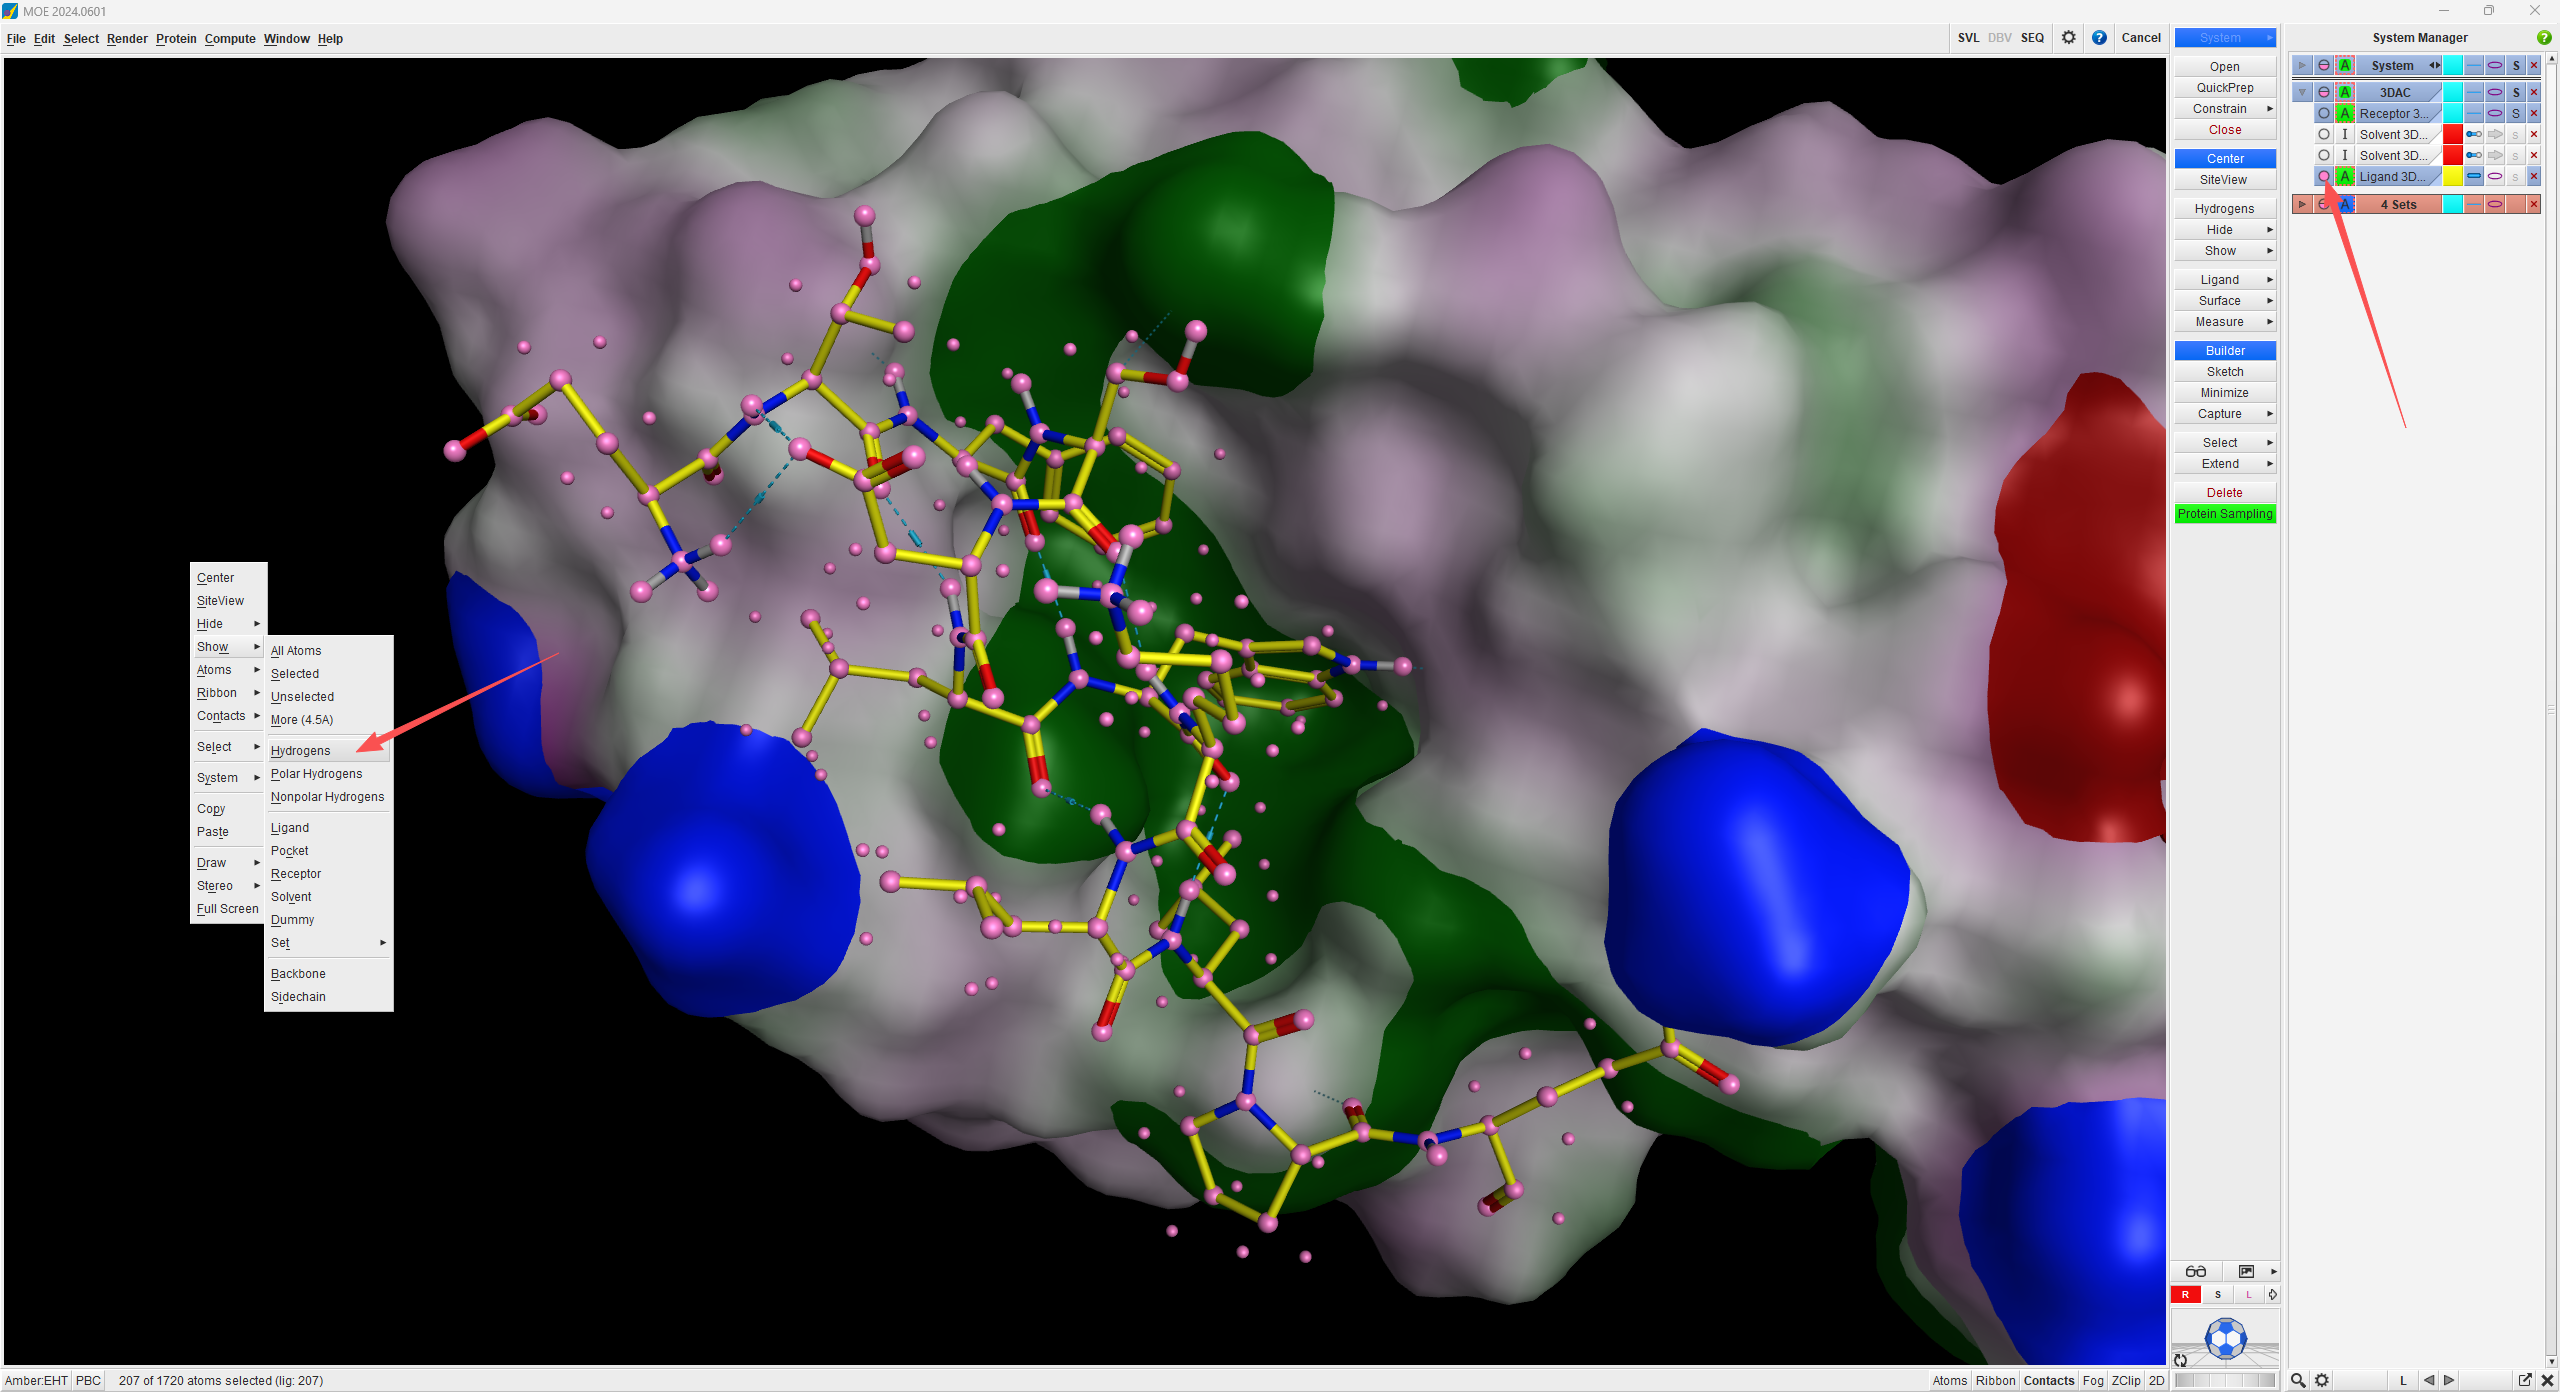
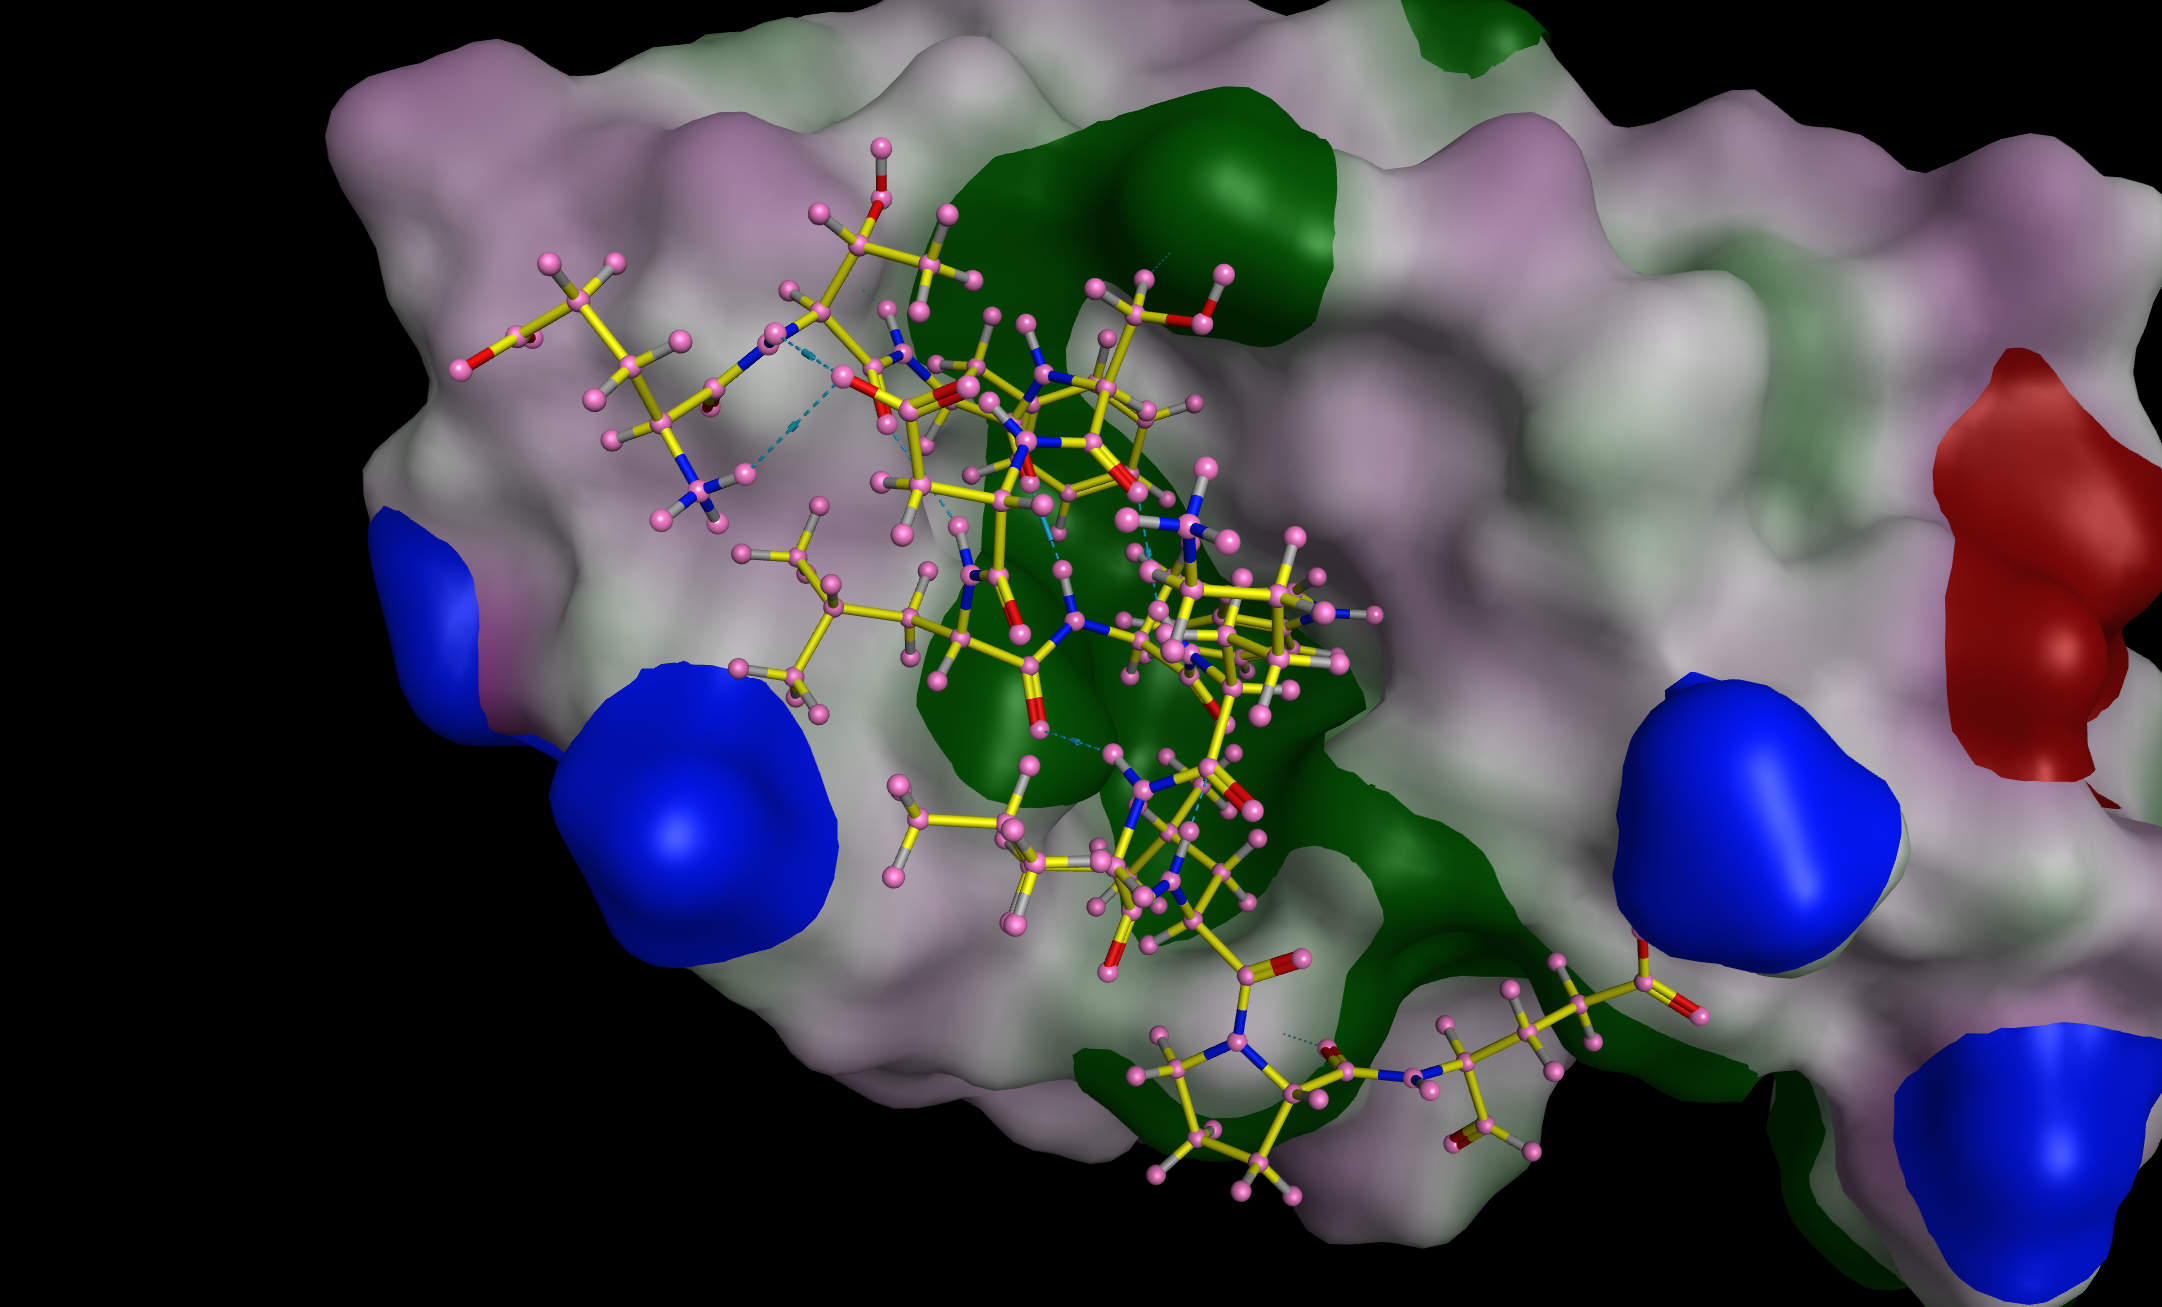
如果发现某个氢原子距离 interaction surface 还有空间,就意味着这个位置可能还有继续向外延伸的可能。
因此这里就可以思考:
这里的 Hydrogen 能不能换成 Chlorine?
也就是说,Surface 不只是用来"画漂亮的蛋白表面"。
它真正的用途是:
帮助我们寻找尚未被充分利用的空间。
这就是结构基础肽优化最经典的思路之一:
先找到已有关键结合残基,再观察它周围是否还有可以利用的空间,然后提出新的结构修饰方案。
本篇小结
Protein Contacts 告诉我们"哪些残基重要",而 Surface 分析进一步告诉我们:
这些残基为什么重要,以及它们周围还有没有继续优化的空间。
在 Mdmx--p53 案例中,Phe19、Trp23 和 Leu26 深入结合槽,而 Mdmx 的主要 hydrophobic patch 恰好也位于这一区域。
到这里,我们已经开始从"描述已有结构"转向"提出新的设计假设"。
但只知道某个位置存在空间还不够。
下一步还需要回答:
这个位置究竟需要疏水基团、氢键供体,还是氢键受体?
下一篇我们将进入 MOE Electrostatic Map,进一步分析结合位点需要什么样的化学功能团,并看看课程是如何从电势图直接提出 Leu22、Leu26 和 Phe19 的突变设计方案的。